

270 B IOLOGIE CELLULAIRE
(une proline elle aussi hydroxylée post-traductionnellement). Soit ces motifs sont simples et constitués de un à quatre résidus sucrés (ou dérivés de
sucres), comme on en touve dans la glycophorine ,
protéine glycosylée transmembranaire très abondante dans les hématies humaines, soit ils sont de
très grande taille et très complexes au plan chimique (chaînes de glycosaminoglycanes de
80 résidus ou plus ; voir chapitre 14).
Dans le premier cas, les molécules obtenues
sont nommées glycoprotéines ; la partie glucidique ne représente jamais plus de 50-60 % de la
masse totale de la molécule. Dans le second cas, on
peut obtenir des molécules de très haute masse
moléculaire, dont l’essentiel est constitué de sucres
ou dérivés (jusqu’à 95 %) et dont la partie axiale,
proprement protéique, devient très minoritaire en
masse ; de telles molécules sont nommées protéoglycanes. Les dérivés sucrés de ces dernières possèdent des groupements substitués divers : acides,
amines, acétyles, sulfates…, qui confèrent à ces
macromolécules des propriétés de charge électrique et d’hydrophilie remarquables. Les protéoglycanes sont des composés de sécrétion que l’on
retrouve dans les espaces extracellulaires, sous
forme de matrice extracellulaire plus ou moins
minéralisée : tissu conjonctif, cartilage… (en association avec des protéines ; voir chapitre 13). Les
mucus divers, à rôle protecteur ou lubrifiant, produits par les organismes ou les êtres unicellulaires
sont aussi des molécules de ce type.
3.3.3. E NZYMOLOGIE DE LA O-GLYCOSYLATION
La synthèse des longues chaînes de sucres
modifiés, le greffage des sulfates (grâce à des
sulfo-transférases), l’accrochage sur les chaînes
polypeptidiques, se déroulent dans les saccules les
plus externes de l’appareil de Golgi, où toutes ces
réactions sont catalysées par une panoplie complexe d’enzymes membranaires ou solubles appropriées. L’accumulation de tels composés dans les
saccules trans des dictyosomes est sans doute responsable de leur aspect gonflé et irrégulier.
Les sucres utilisés comme substrats sont en fait
des molécules activées : les nucléotides-sucres
(UDP-glucose, le GDP-mannose, l’UDP-galactose,
l’UDP N-acétylglucosamine…). Ces composés sont
produits dans le hyaloplasme et doivent être
importés dans les saccules golgiens pour assurer la
glycosylation. La membrane de ces derniers
- NANA = acide Nacétyl neuraminique
- gal = galactose
- N-Aglc = N-acétyl
glucosamine
- Man = mannose
- Fuc = fucose
- Asn = asparagine
- X = acide aminé
quelconque
- Ser = sérine
- Thr = thréonine
NANA NANANANANANA
gal
gal
gal
gal
N-Aglc N-Aglc N-Aglc
N-Aglc
Man
Man
Man
Man
Man
Man
Man
Man
N-Aglc
N-Aglc
N-Aglc
N-Aglc
Fuc
Fuc
NH 2
Asn
X
Ser
Thr
COOH NH 2
Asn
X
Ser
Thr
COOH
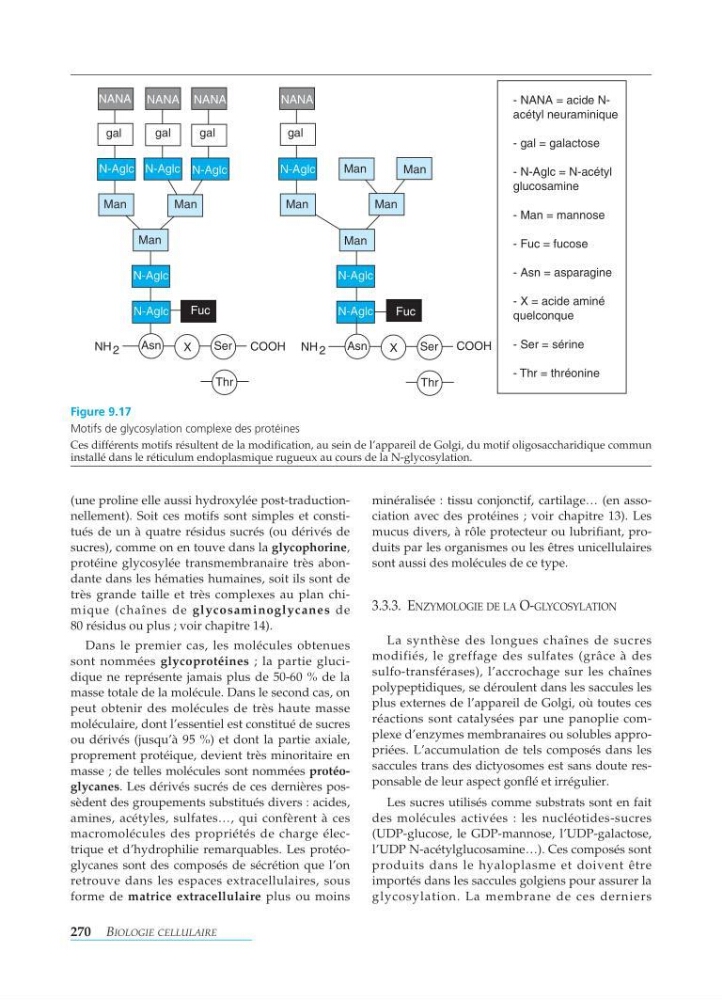
Figure 9.17
Motifs de glycosylation complexe des protéines
Ces différents motifs résultent de la modification, au sein de l’appareil de Golgi, du motif oligosaccharidique commun
installé dans le réticulum endoplasmique rugueux au cours de la N-glycosylation.