

protéines qui les empaquettent, les condensent et
donc raccourcissent leur taille apparente.
Ces protéines sont organisées en particules d’un
diamètre voisin de 20 nm, recouvrant environ
500 nucléotides d’ARN, d’une façon rappelant un
peu ce qui se passe dans un nucléosome pour
l’ADN. Ces grosses particules sont nommées : particules ribonucléoprotéiques nucléaires hétérogènes (ou PRnh), car elles sont associées aux ARN
dits hétérogènes. Lorsqu’on les isole, et après avoir
digéré l’ARN qui les réunit, on peut identifier et
purifier une dizaine de protéines distinctes qui en
constituent le cœur. Le rôle de ces particules est
sans doute de protéger les ARN contre les attaques
nucléasiques qui pourraient les détruire pendant
la période critique où ceux-ci subissent leurs remaniements intranucléaires (la maturation). À côté de
ces PRnh, il existe d’autres particules associées aux
ARN naissants, de taille plus modeste mais plus
solidement accrochées à leur support. C’est au sein
de ces particules que l’on trouve les petits ARN
nommés sn RNA ; le rôle de ces dernières est de
participer directement aux processus de maturation de l’ARNm, qui seront développés plus loin.
Une autre remarque importante doit être faite :
la taille moyenne mesurée pour les unités de transcription bien identifiables est toujours beaucoup
plus longue (de 5 à 10 fois, mais parfois plus) que
celle attendue d’après la taille moyenne des protéines synthétisées dans le cytoplasme (300500 acides aminés) et des ARNm qui les codent
(1 000-2 000 nucléotides). Cette observation
confirme les données de la biochimie présentées
plus haut, à savoir que les ARN nucléaires sont
bien plus longs que ceux isolés du cytoplasme, ceci
étant particulièrement vrai pour les ARNm.
5. TRANSCRIPTION DES GÈNES
CODANT LES PROTÉINES
(ARNm)
Les ARNm sont ceux qui portent l’information
correspondant aux protéines ; ils sont le résultat de
la transcription, par l’ARN polymérase II, de gènes
qui ont une organisation particulière chez les
Eucaryotes (succession d’exons et d’introns). Cette
organisation caractéristique, dite en mosaïque, a
été présentée dans le chapitre 4. Nous l’illustrerons
ici au moyen de quelques exemples.
5.1. Organisation générale des gènes
eucaryotiques codant les protéines
(rappels)
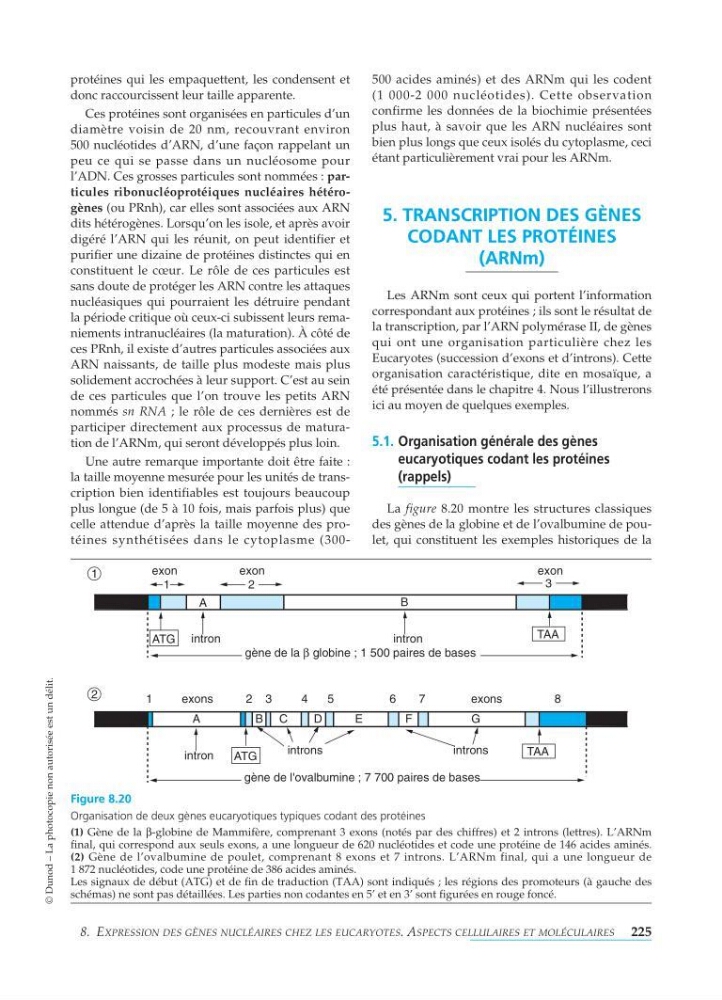
La figure 8.20 montre les structures classiques
des gènes de la globine et de l’ovalbumine de poulet, qui constituent les exemples historiques de la
exon
exon
1
2
ATG intron
A
gène de la β globine ; 1 500 paires de bases
TAA
intron
B
exon
3
1
exons
2 3
4
5
6
7
exons
8
ATG
TAA
introns
introns
intron
A
B C
D
E
F
G
gène de l'ovalbumine ; 7 700 paires de bases
Figure 8.20
Organisation de deux gènes eucaryotiques typiques codant des protéines
(1) Gène de la β -globine de Mammifère, comprenant 3 exons (notés par des chiffres) et 2 introns (lettres). L’ARNm
final, qui correspond aux seuls exons, a une longueur de 620 nucléotides et code une protéine de 146 acides aminés.
(2) Gène de l’ovalbumine de poulet, comprenant 8 exons et 7 introns. L’ARNm final, qui a une longueur de
1872 nucléotides, code une protéine de 386 acides aminés.
Les signaux de début (ATG) et de fin de traduction (TAA) sont indiqués ; les régions des promoteurs (à gauche des
schémas) ne sont pas détaillées. Les parties non codantes en 5’ et en 3’ sont figurées en rouge foncé.
1
2
8. E XPRESSION DES G È NES NUCLÉAIRES CHEZ LES EUCARYOTES.A SPECTS CELLULAIRES ET MOLÉCULAIRES 225
© Dunod – La photocopie non autorisée est un délit.