

De grande taille : 5 à 20 µm de diamètre, il est aisément colorable par les techniques de l’histologie
classique (voir chapitre 2). De forme le plus souvent sphérique ou lenticulaire, il présente parfois
un aspect plurilobé (dans des globules blancs dits,
à tort, polynucléaires) ; il peut aussi prendre une
forme très allongée dans certaines cellules spécialisées telles que les spermatozoïdes ou les cellules
musculaires lisses. Le volume du noyau est en
général proportionnel à celui de la cellule (10 % en
moyenne) ; chez un organisme donné, cependant,
sa taille relative ( rapport nucléocytoplasmique)
est un indice de l’activité physiologique de la cellule. Ce rapport est d’autant plus élevé que l’activité cellulaire est importante ; les cellules
embryonnaires ou méristématiques, par exemple,
ont un noyau volumineux et sont caractérisées par
un rapport nucléocytoplasmique élevé.
1.1.2. S TRUCTURE ET ULTRASTRUCTURE NUCLÉAIRES
Après une coloration appropriée (à l’hématoxyline, qui est un colorant basique, par exemple), le
noyau présente une structure complexe. Il apparaît limité par un système membranaire en apparence simple : la « membrane nucléaire ». Son
contenu montre un réseau intensément colorable,
d’aspect réticulé ou granuleux, nommé chromatine (substance «prenant les colorants ») ; celle-ci
baigne dans un liquide incolore : le suc nucléaire
ou nucléoplasme. Enfin, on observe un ou plusieurs globules de 1 à 3 µ m de diamètre, colorables
par des techniques différentes de celles colorant la
chromatine : les nucléoles (voir figures 2.7 et 2.8).
• En microscopie électronique, la frontière
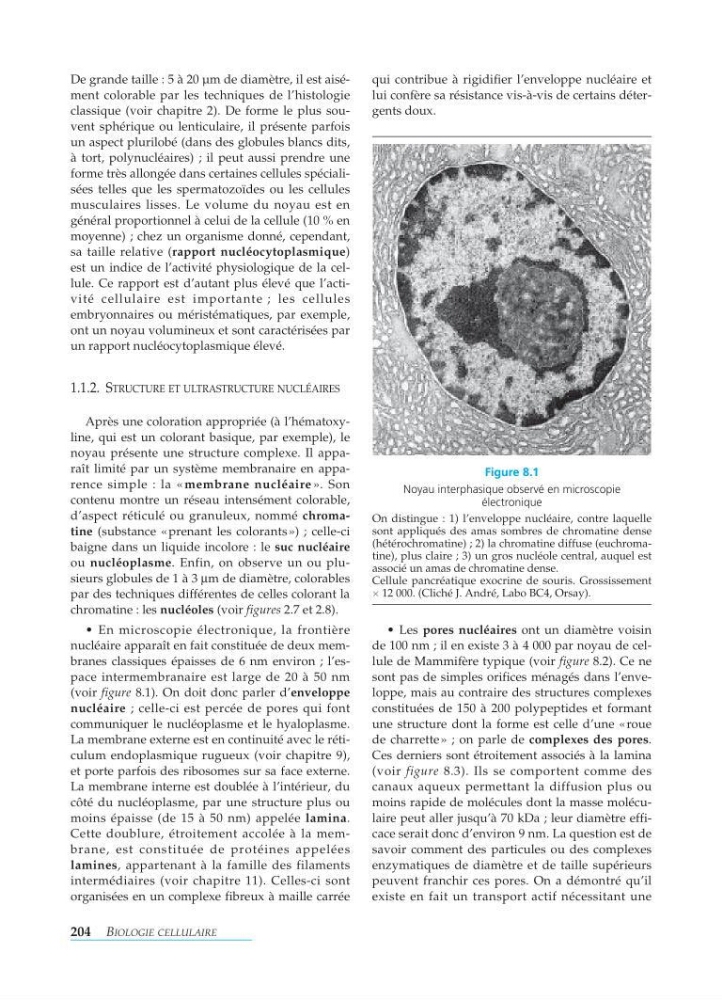
nucléaire apparaît en fait constituée de deux membranes classiques épaisses de 6n m environ ; l’espace intermembranaire est large de 20 à 50 nm
(voir figure 8.1). On doit donc parler d’enveloppe
nucléaire ; celle-ci est percée de pores qui font
communiquer le nucléoplasme et le hyaloplasme.
La membrane externe est en continuité avec le réticulum endoplasmique rugueux (voir chapitre 9),
et porte parfois des ribosomes sur sa face externe.
La membrane interne est doublée à l’intérieur, du
côté du nucléoplasme, par une structure plus ou
moins épaisse (de 15 à 50 nm) appelée lamina.
Cette doublure, étroitement accolée à la membrane, est constituée de protéines appelées
lamines, appartenant à la famille des filaments
intermédiaires (voir chapitre 11). Celles-ci sont
organisées en un complexe fibreux à maille carrée
qui contribue à rigidifier l’enveloppe nucléaire et
lui confère sa résistance vis-à-vis de certains détergents doux.
• Les pores nucléaires ont un diamètre voisin
de 100 nm ; il en existe 3 à 4000 par noyau de cellule de Mammifère typique (voir figure 8.2). Ce ne
sont pas de simples orifices ménagés dans l’enveloppe, mais au contraire des structures complexes
constituées de 150 à 200 polypeptides et formant
une structure dont la forme est celle d’une «roue
de charrette»;on parle de complexes des pores.
Ces derniers sont étroitement associés à la lamina
(voir figure 8.3). Ils se comportent comme des
canaux aqueux permettant la diffusion plus ou
moins rapide de molécules dont la masse moléculaire peut aller jusqu’à 70 kDa ; leur diamètre efficace serait donc d’environ 9nm. La question est de
savoir comment des particules ou des complexes
enzymatiques de diamètre et de taille supérieurs
peuvent franchir ces pores. On a démontré qu’il
existe en fait un transport actif nécessitant une
204 B IOLOGIE CELLULAIRE
Figure 8.1
Noyau interphasique observé en microscopie
électronique
On distingue : 1) l’enveloppe nucléaire, contre laquelle
sont appliqués des amas sombres de chromatine dense
(hétérochromatine) ; 2) la chromatine diffuse (euchromatine), plus claire ; 3) un gros nucléole central, auquel est
associé un amas de chromatine dense.
Cellule pancréatique exocrine de souris. Grossissement
12 000. (Cliché J. André, Labo BC4, Orsay).