

5. O RGANISATION GÉNÉRALE ET FONCTIONS DES MEMBRANES BIOLOGIQUES 135
© Dunod – La photocopie non autorisée est un délit.
chapitre 13). Au sens large, la transduction est
donc la conversion d’un signal d’un type donné en
un signal intracellulaire d’un autre type ; ce terme
est également utilisé dans le cas des cellules sensorielles qui captent des signaux physiques (lumière,
chaleur, mouvement, champ magnétique…) et qui
induisent une réponse cellulaire particulière, le
plus souvent, chez les Animaux, sous la forme
d’un signal électrique. Des exemples existent aussi
chez les Bactéries.
Dans le cas des cellules nerveuses, la membrane
plasmique des longs prolongements appelés
axones possède la propriété remarquable de
conduire sur de longues distances une information
sous la forme d’un courant électrique transmembranaire localisé ; celui-ci, nommé potentiel
d’action, se propage depuis le corps cellulaire
jusqu’aux extrémités synaptiques (chapitre 6).
Cette propriété de la membrane tient à la présence
de différentes protéines intrinsèques fonctionnant
comme des canaux ioniques spécifiques (des ions
K
+
ou Na
+
, par exemple). Ces canaux, comme les
récepteurs signalés plus haut, sont sensibles à des
facteurs externes physiques (la tension électrique)
ou des médiateurs chimiques (les neurotransmetteurs, telle l’acétylcholine) qui contrôlent leur fonctionnement. (Voir l’ouvrage de G. H ENNEN,
Biochimie).
4.6. Fonction de reconnaissance
et d’adhérence entre les cellules
Ce dernier type de fonction ne concerne que les
organismes animaux, chez qui les cellules voisines
sont souvent amenées à contracter des liens étroits
par l’intermédiaire de leurs membranes plasmiques. Au niveau de celles-ci, ils sont en effet les
seuls à posséder des dispositifs spécialisés
d’ancrage et de communication directe construits
à partir de protéines intrinsèques transmembranaires et appelés jonctions intercellulaires. Toutes
ces structures, qui constituent une condition indispensable à l’établissement de l’état pluricellulaire
animal, sont décrites en détail dans le chapitre 14.
Nous verrons à cette occasion que les membranes des cellules appartenant à un même tissu
animal sont également porteuses de nombreuses
protéines assurant entre elles une reconnaissance
spécifique, sans que des structures particulières
soient différenciées et cytologiquement visibles.
Enfin, divers types de cellules entrent en contact,
par l’intermédiaire de protéines de leur membrane
plasmique, avec des constituants chimiques variés
remplissant les espaces intercellulaires. Ces derniers, qui sont particulièrement développés dans
le cas du tissu conjonctif, par exemple, sont remplis en effet d’une matrice extracellulaire (produit
de la sécrétion des cellules elles-mêmes) dont les
fonctions multiples seront également décrites dans
le chapitre 14.
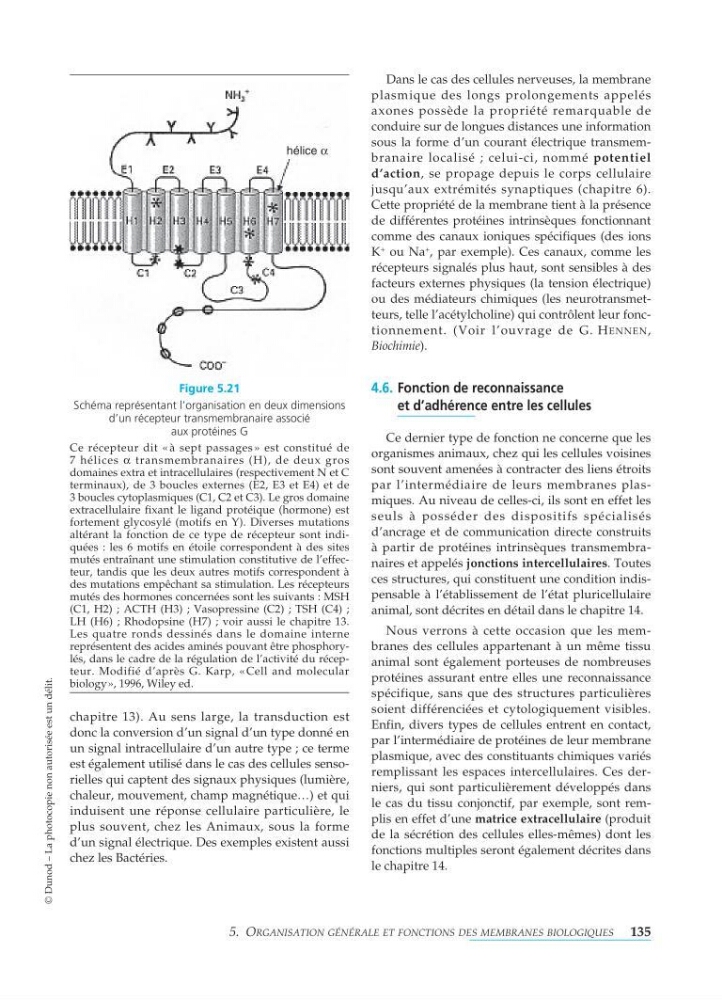
Figure 5.21
Schéma représentant l’organisation en deux dimensions
d’un récepteur transmembranaire associé
aux protéines G
Ce récepteur dit «à sept passages » est constitué de
7h élices α transmembranaires (H), de deux gros
domaines extra et intracellulaires (respectivement N et C
terminaux), de 3 boucles externes (E2, E3 et E4) et de
3boucles cytoplasmiques (C1, C2 et C3). Le gros domaine
extracellulaire fixant le ligand protéique (hormone) est
fortement glycosylé (motifs en Y). Diverses mutations
altérant la fonction de ce type de récepteur sont indiquées : les 6 motifs en étoile correspondent à des sites
mutés entraînant une stimulation constitutive de l’effecteur, tandis que les deux autres motifs correspondent à
des mutations empêchant sa stimulation. Les récepteurs
mutés des hormones concernées sont les suivants : MSH
(C1, H2) ; ACTH (H3) ; Vasopressine (C2) ; TSH (C4) ;
LH (H6) ; Rhodopsine (H7) ; voir aussi le chapitre 13.
Les quatre ronds dessinés dans le domaine interne
représentent des acides aminés pouvant être phosphorylés, dans le cadre de la régulation de l’activité du récepteur. Modifié d’après G. Karp, «Cell and molecular
biology», 1996, Wiley ed.
hélice α