

130 B IOLOGIE CELLULAIRE
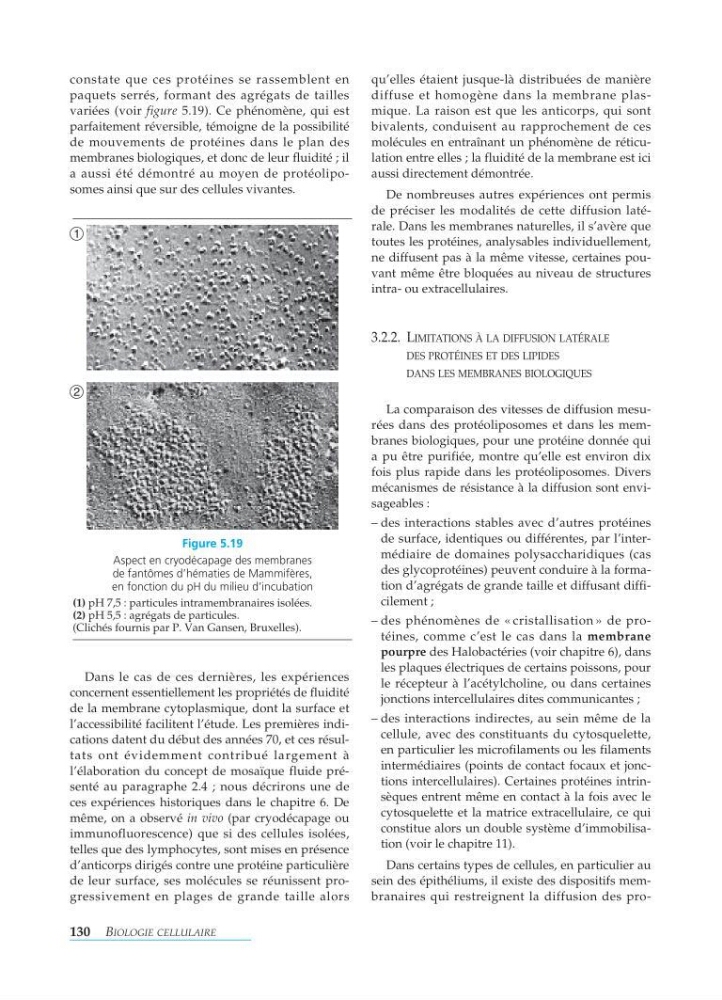
constate que ces protéines se rassemblent en
paquets serrés, formant des agrégats de tailles
variées (voir figure 5.19). Ce phénomène, qui est
parfaitement réversible, témoigne de la possibilité
de mouvements de protéines dans le plan des
membranes biologiques, et donc de leur fluidité ; il
a aussi été démontré au moyen de protéoliposomes ainsi que sur des cellules vivantes.
Dans le cas de ces dernières, les expériences
concernent essentiellement les propriétés de fluidité
de la membrane cytoplasmique, dont la surface et
l’accessibilité facilitent l’étude. Les premières indications datent du début des années 70, et ces résultats ont évidemment contribué largement à
l’élaboration du concept de mosaïque fluide présenté au paragraphe 2.4 ; nous décrirons une de
ces expériences historiques dans le chapitre 6. De
même, on a observé in vivo (par cryodécapage ou
immunofluorescence) que si des cellules isolées,
telles que des lymphocytes, sont mises en présence
d’anticorps dirigés contre une protéine particulière
de leur surface, ses molécules se réunissent progressivement en plages de grande taille alors
qu’elles étaient jusque-là distribuées de manière
diffuse et homogène dans la membrane plasmique. La raison est que les anticorps, qui sont
bivalents, conduisent au rapprochement de ces
molécules en entraînant un phénomène de réticulation entre elles ; la fluidité de la membrane est ici
aussi directement démontrée.
De nombreuses autres expériences ont permis
de préciser les modalités de cette diffusion latérale. Dans les membranes naturelles, il s’avère que
toutes les protéines, analysables individuellement,
ne diffusent pas à la même vitesse, certaines pouvant même être bloquées au niveau de structures
intra- ou extracellulaires.
3.2.2. L IMITATIONS ÀL AD IFFUSION LATÉRALE
DES PROTÉINES ET DES LIPIDES
DANS LES MEMBRANES BIOLOGIQUES
La comparaison des vitesses de diffusion mesurées dans des protéoliposomes et dans les membranes biologiques, pour une protéine donnée qui
a pu être purifiée, montre qu’elle est environ dix
fois plus rapide dans les protéoliposomes. Divers
mécanismes de résistance à la diffusion sont envisageables :
–des interactions stables avec d’autres protéines
de surface, identiques ou différentes, par l’intermédiaire de domaines polysaccharidiques (cas
des glycoprotéines) peuvent conduire à la formation d’agrégats de grande taille et diffusant difficilement ;
–des phénomènes de «cristallisation » de protéines, comme c’est le cas dans la membrane
pourpre des Halobactéries (voir chapitre 6), dans
les plaques électriques de certains poissons, pour
le récepteur à l’acétylcholine, ou dans certaines
jonctions intercellulaires dites communicantes ;
–des interactions indirectes, au sein même de la
cellule, avec des constituants du cytosquelette,
en particulier les microfilaments ou les filaments
intermédiaires (points de contact focaux et jonctions intercellulaires). Certaines protéines intrinsèques entrent même en contact à la fois avec le
cytosquelette et la matrice extracellulaire, ce qui
constitue alors un double système d’immobilisation (voir le chapitre 11).
Dans certains types de cellules, en particulier au
sein des épithéliums, il existe des dispositifs membranaires qui restreignent la diffusion des proFigure 5.19
Aspect en cryodécapage des membranes
de fantômes d’hématies de Mammifères,
en fonction du pH du milieu d’incubation
(1) pH 7,5 : particules intramembranaires isolées.
(2) pH 5,5 : agrégats de particules.
(Clichés fournis par P. Van Gansen, Bruxelles).
1
2