

4. F LUX DE L ’ INFORMATION GÉNÉTIQUE.S TRUCTURE ET EXPRESSION DES G È NES.
99
© Dunod – La photocopie non autorisée est un délit.
Ces propriétés remarquables de sélectivité des
inhibiteurs de la synthèse protéique au niveau des
ribosomes sont très utiles dans la recherche expérimentale en biologie, car elles permettent de distinguer dans les cellules eucaryotiques les
mécanismes de synthèse protéique propres à leurs
différents compartiments. Par exemple, le chloramphénicol n’inhibe que la synthèse protéique
liée aux mitochondries ou aux chloroplastes, tandis que la cycloheximide ou l’anisomycine n’agissent que sur les ribosomes 80 S du hyaloplasme. Il
existe aussi d’autres antibiotiques non spécifiques,
inhibant la synthèse protéique chez tous les êtres
vivants, au niveau de toutes leurs catégories de
ribosomes, comme la puromycine.
6.3. Transcription et traduction simultanées
chez les Procaryotes
Chez les Procaryotes, l’absence de systèmes
membranaires et de compartimentation fait que le
matériel génétique est directement en contact avec
le cytoplasme, et donc avec les ribosomes qu’il
contient. Ceci a pour conséquence directe que la
synthèse des protéines peut démarrer sans délai
sur un ARNm qui vient juste d’être transcrit sur
l’ADN. En fait, comme c’est l’extrémité 5’ P de
l’ARNm qui est libérée la première au cours de la
transcription, et qui sert aussi de point de départ
de la traduction, les ribosomes ont la possibilité de
s’associer aux ARNm avant que ces derniers soient
complètement terminés ; leur extrémité 3’ OH est
encore accrochée à l’ADN par l’ARN polymérase
alors que l’extrémité 5’ P est déjà décodée. La progression de l’ARN polymérase et celle des ribosomes le long de l’ARNm se font sensiblement à la
même vitesse : 14 ou 15 codons synthétisés ou
décodés par seconde. Ce phénomène est appelé :
transcription et traduction simultanées, et il est
très fréquemment rencontré chez les Bactéries, en
particulier celles dont la croissance est rapide. En
revanche, l’existence du noyau chez les Eucaryotes
conduit à la séparation de ces deux processus fondamentaux ; les conséquences en seront en fait
considérables (voir chapitre 8).
Dès que l’extrémité 5’ P de l’ARNm est libérée
par le premier ribosome qui a un peu progressé
vers l’autre extrémité, un autre vient se fixer à ce
niveau, et ainsi de suite, de sorte qu’un seul ARNm
porte un grand nombre de ribosomes qui le décodent simultanément. Cette structure constituée de
nombreux ribosomes disposés en «train» sur un
seul ARNm est appelée un polyribosome ou polysome. La longueur de la chaîne polypeptidique
naissante associée à chaque ribosome est proportionnelle à la distance parcourue par celui-ci le
long de la séquence codante de l’ARNm. Comme
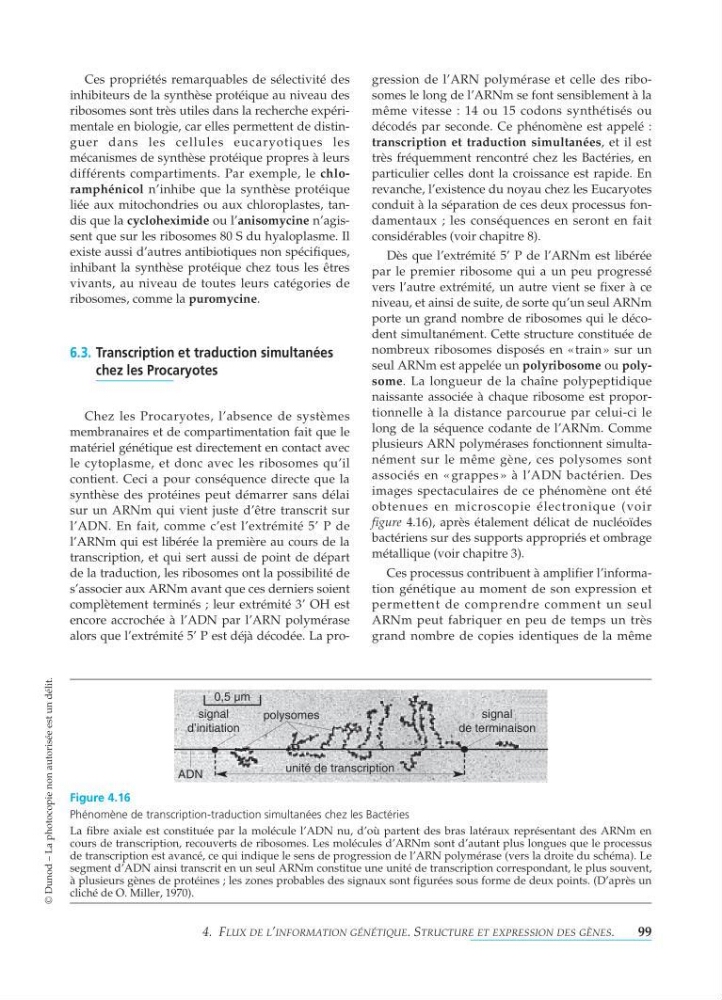
plusieurs ARN polymérases fonctionnent simultanément sur le même gène, ces polysomes sont
associés en «grappes » à l’ADN bactérien. Des
images spectaculaires de ce phénomène ont été
obtenues en microscopie électronique (voir
figure 4.16), après étalement délicat de nucléoïdes
bactériens sur des supports appropriés et ombrage
métallique (voir chapitre 3).
Ces processus contribuent à amplifier l’information génétique au moment de son expression et
permettent de comprendre comment un seul
ARNm peut fabriquer en peu de temps un très
grand nombre de copies identiques de la même
signal
d’initiation
signal
de terminaison
polysomes
0,5 µm
unité de transcription
ADN
Figure 4.16
Phénomène de transcription-traduction simultanées chez les Bactéries
La fibre axiale est constituée par la molécule l’ADN nu, d’où partent des bras latéraux représentant des ARNm en
cours de transcription, recouverts de ribosomes. Les molécules d’ARNm sont d’autant plus longues que le processus
de transcription est avancé, ce qui indique le sens de progression de l’ARN polymérase (vers la droite du schéma). Le
segment d’ADN ainsi transcrit en un seul ARNm constitue une unité de transcription correspondant, le plus souvent,
à plusieurs gènes de protéines ; les zones probables des signaux sont figurées sous forme de deux points. (D’après un
cliché de O. Miller, 1970).