

Chapitre III
Etude des paramètres biologiques
38
2.3.3 Discussion
On remarque que les points observés se rapprochent de la courbe théorique, le groupe d’âge I n’a
pas été déterminé par manque d’effectifs des petits individus. En ce qui concerne les autres groupes
d’âge un bon ajustement des points est observé, à noter qu’une amélioration des effectifs des grands
et des petits individus serait appréciable pour bien distinguer les écarts des poids observés et des
poids théoriques.
D’après la littérature nos résultats se rapprochent de ceux obtenus par Andaloro(1982), alors qu’on
retrouve une divergence avec les autres auteurs.
Cette divergence est probablement du à la fiabilité des échantillonnages utilisés, de la
diversification des zones étudiées, ainsi que de la variation des longueurs et du poids asymptotiques
obtenus.
3. Etude des mortalités
La mortalité totale peut être définie par le nombre d’individus disparus par mort durant un
intervalle de temps donné (le jour, le mois ou l’année) (Korichi, 1988). Les causes de cette
mortalité chez le poisson sont soit naturelles (maladie, sénilité, prédation…) soit dues à la pêche
(exploitation par l'homme).
3.1. Matériel et méthodes
3.1.1. Détermination de la mortalité totale (Z)
Soit Z, le taux instantané de mortalité totale s’appliquant sur une population de
poissons. La relation dN/dt=-ZN décrit la variation instantanée du nombre d’individus N.
• Soit à t = 0; N 0 effectif initial de la population
• Soit au temps t; Nt effectif au temps t
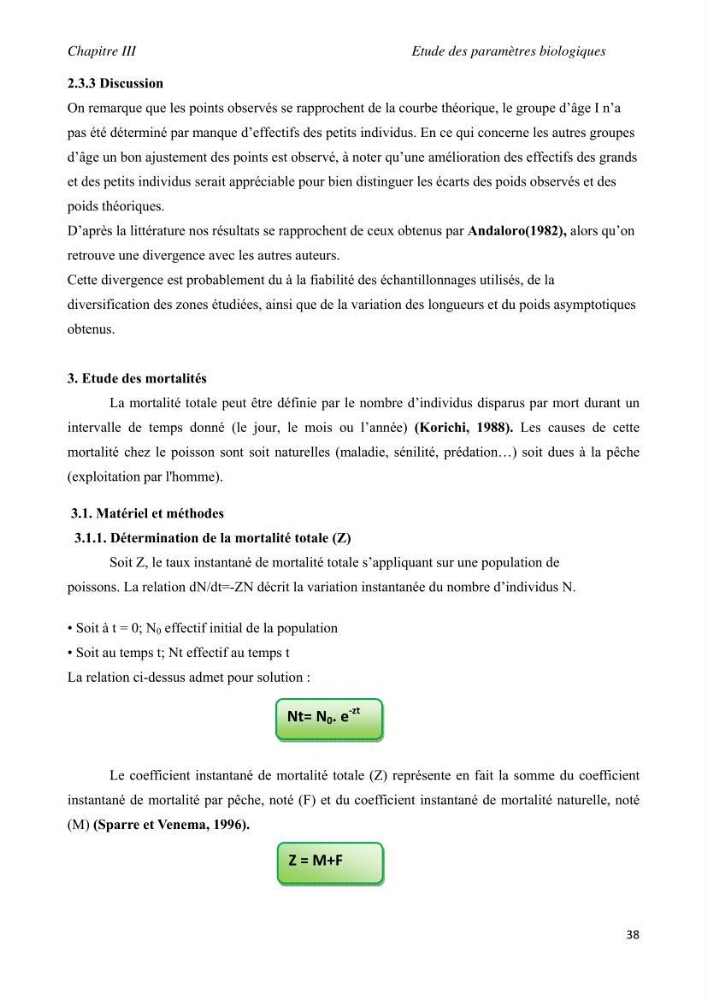
La relation ci-dessus admet pour solution :
Le coefficient instantané de mortalité totale (Z) représente en fait la somme du coefficient
instantané de mortalité par pêche, noté (F) et du coefficient instantané de mortalité naturelle, noté
(M) (Sparre et Venema, 1996).
Nt= N 0 . e
‐zt
Z = M+F