

98
Collection PCEM / BIOCHIMIE 1
___—W
.
On ne peut pas parler d’inhibition compétitive ou non compétitive
comme dans le cas des enzymes michaeliennes. Mais l’inhibition tendra vers
l’inhibition compétitive si la liaison avec le substrat est modié et vers l’inhi—
bition non compétitive si c’est la vitesse de réaction qui est diminuée.
.
Le phénomène de rétroinhîbition existe dans
le cas d’enzymes
allostériques : dans une chaîne métabolique dont la llereétape est catalysée
par une enzyme allostérique, le produit final de la chaine de réaction peut
inhiber cette enzyme (bien que ce produit n’ait pas d’analogie structurale
avec le substrat)
_2__: MQDE LE MWC.
'
Un modèle satisfaisant peut expliquer les cinétiques non michaeliennes :
celui de MONOD, WYMAN et CHANGEUX.
L’enzyme allostérique est un oligomère formé d’un nombre pair de sousunités ou protomères. Chaque protomère possède un site pour le substrat (S),
un autre pour l’inhibiteur (I) et un autre pour le cosubstrat (activateur (A) ).
La dissociation de ces protomères aboutit à une cinétique de type michaelienne.
‘
(S), (I) et (A) sont appeles ligands.
a) Formes R et T.
-
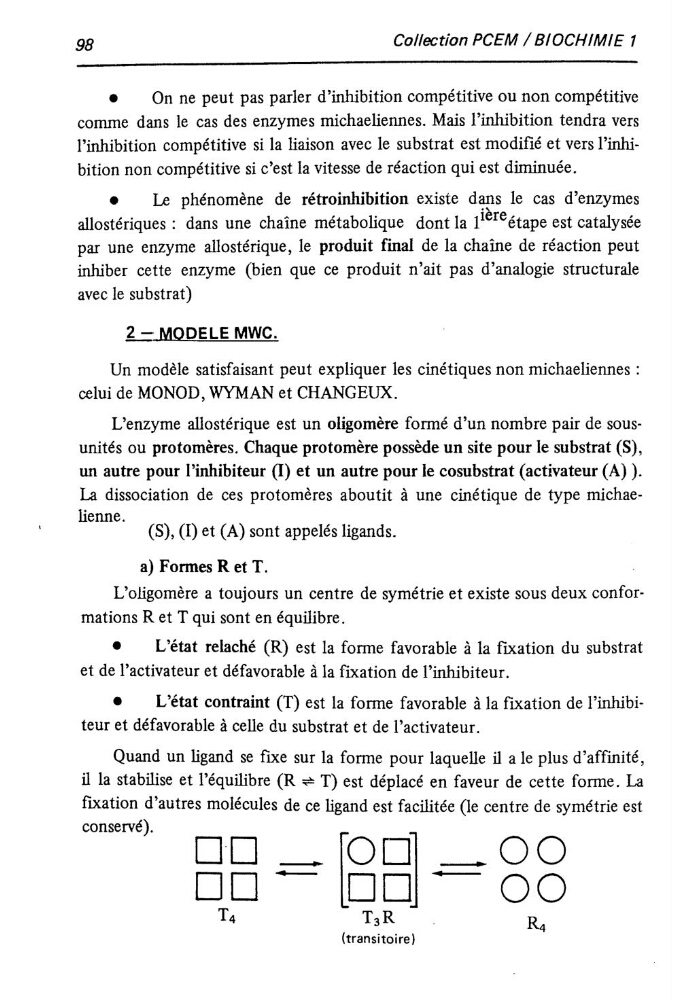
L’oligomère a toujours un centre de symétrie et existe sous deux conformations R et T qui sont en équilibre.
.
L’état relaché (R) est la forme favorable à la xation du substrat
et de l’activateur et défavorable àla xation de l’inhibiteur.
.
L’état contraint (T) est la forme favorable àla xation de l’inhibi—
teur et défavorable à celle du substrat et de l’activateur.
Quand un ligand se xe sur la forme pour laquelle il a le plus d’affinité,
il la stabilise et l’équilibre (R :—* T) est déplacé en faveur de cette forme. La
xation d’autres molécules de ce ligand est facilitée (le centre de symétrie est
conservé).
[] D
_,
_.
O 0
T4
T3R
R4
(transitoire)