

Ionophores macrocycliques naturels
a) Liaisons hydrogène
22 1
Elles sont d’une importance déterminante dans la conformation générale
de la protéine; ce sont elles qui maintiennent la structure secondaire. Suivant
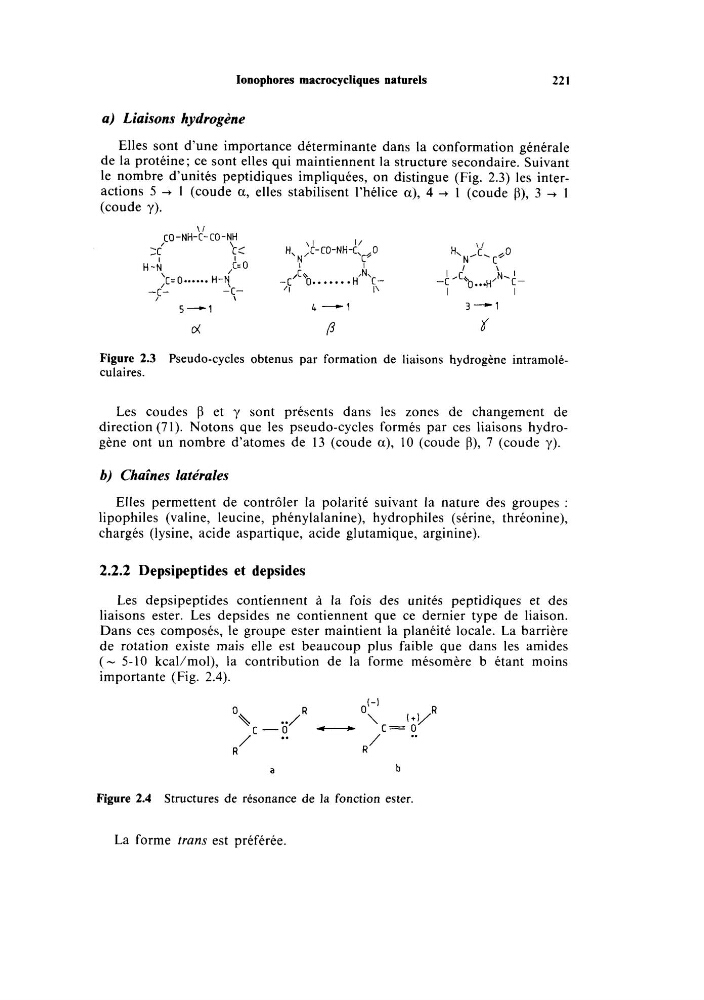
le nombre d’unités peptidiques impliquées, on distingue (Fig. 2.3) les interactions 5 -+ 1 (coude a, elles stabilisent l’hélice a), 4 -+ 1 (coude fi), 3 -, 1
(coude y).
\ I
I
I /
\ I
CO-NH-C-C0-N:
\ I
:
C
C :
H, y, C-CO-NH-C, C, O
H- .
N’ C,
[ , O
I
‘
I
-C- C’ I
I\
I
I
C= O
,
C =O......
H-N,
-c/~&.. . . . . . H . N ‘CO(
/3
d
-:-Lo ... H/N-CH-N,
5-1
4 - 1
3-1
Figure 2.3
culaires.
Pseudo-cycles obtenus par formation de liaisons hydrogène intramoléLes coudes
et y sont présents dans les zones de changement de
direction (71). Notons que les pseudo-cycles formés par ces liaisons hydrogène ont un nombre d’atomes de 13 (coude a), 10 (coude b), 7 (coude y).
b) Chaînes latérales
Elles permettent de contrôler la polarité suivant la nature des groupes :
lipophiles (valine, leucine, phénylalanine), hydrophiles (sérine, thréonine),
chargés (lysine, acide aspartique, acide glutamique, arginine).
2.2.2 Depsipeptides et depsides
Les depsipeptides contiennent à la fois des unités peptidiques et des
liaisons ester. Les depsides ne contiennent que ce dernier type de liaison.
Dans ces composés, le groupe ester maintient la planéité locale. La barrière
de rotation existe mais elle est beaucoup plus faible que dans les amides
( - 5-10 kcal/mol), la contribution de la forme mésomère b étant moins
importante (Fig. 2.4).
a
b
Figure 2.4 Structures de résonance de la fonction ester.
La forme trans est préférée.