

Méthodes enzymatiques
171
que la nature préfère fabriquer UDP Glc et l’épimériser plutôt que fabriquer directement UDP Gal. L‘enzyme est une épimérase (E). Comme la réaction (10.10) est
réversible, on déplace l’équilibre vers la droite avec une cinquième enzyme, la
pyrophosphatase inorganique, qui élimine le pyrophosphate du milieu en catalysant son hydrolyse en phosphate. La somme des réactions (10.8) à (10.12) donne
le bilan de l’opération (10.13).
(10.13)
a-D-glucopyranosyl phosphate + N-acétylglucosamine +
phosphate d’énolpyruvate -+ N-acétyllactosamine + pyruvate + 2 PO,H,
On voit que la source d’énergie primordiale est le phosphate d’énol pyruvate,
composé facilement accessible en grande quantité par synthèse chimique. De
même, l’origine du résidu galactopyranosyle, qui est l’a-D-glucopyranosyl phosphate, 10.48, est également accessible sans problèmes. On voit aussi que les
divers nucléotides ne jouent qu’un rôle catalytique. Or toutes les enzymes concernées sont actives au pH8 ; on peut donc mélanger substrat et enzymes dans le
même récipient et réaliser un cycle où le seul nucléotide ajouté est UDP Glc en
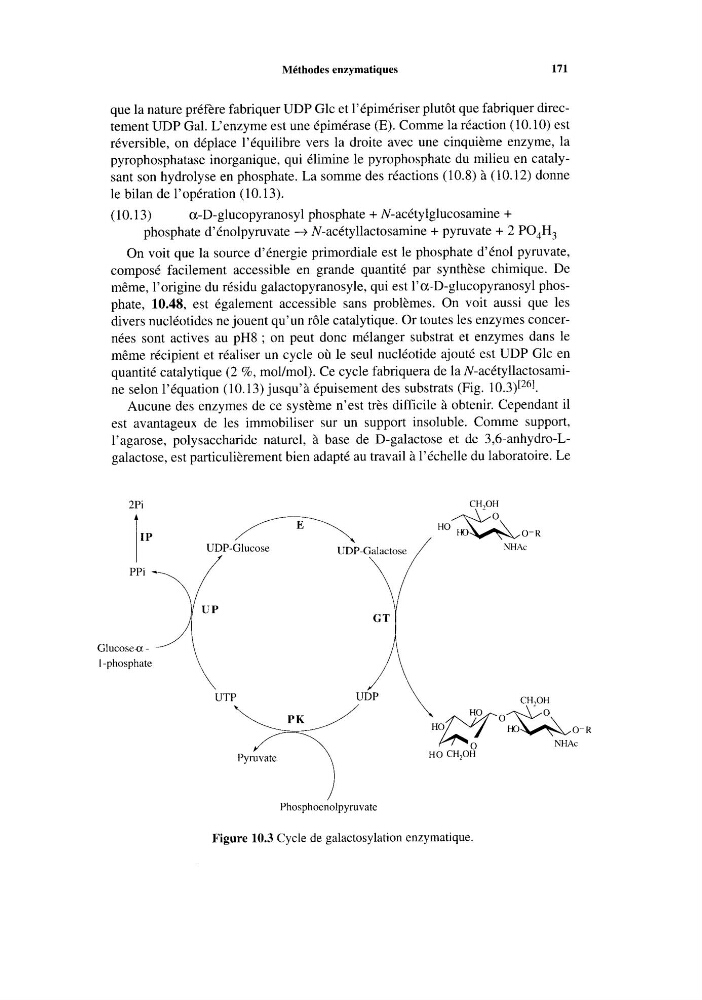
quantité catalytique (2 %, mol/mol). Ce cycle fabriquera de la N-acétyllactosamine selon l’équation (10.13) jusqu’à épuisement des substrats (Fig. 10.3)[26].
Aucune des enzymes de ce système n’est très difficile à obtenir. Cependant il
est avantageux de les immobiliser sur un support insoluble. Comme support,
l’agarose, polysaccharide naturel, à base de D-galactose et de 3,6-anhydro-Lgalactose, est particulièrement bien adapté au travail à l’échelle du laboratoire. Le
2Pi
NHAC
UDP-Glucose
UDP-Galactosc
Glucosea -
1 -phosphate
NHAc
HO CH,OH
/
Phosphoenolpyruvate
Figure 10.3 Cycle de galactosylation enzymatique.