

Spéciation et chélation dans le vivant
35
Protéines
riches en
soufre
Protéines
riches en
soufre
Protéines
pauvres
en soufre
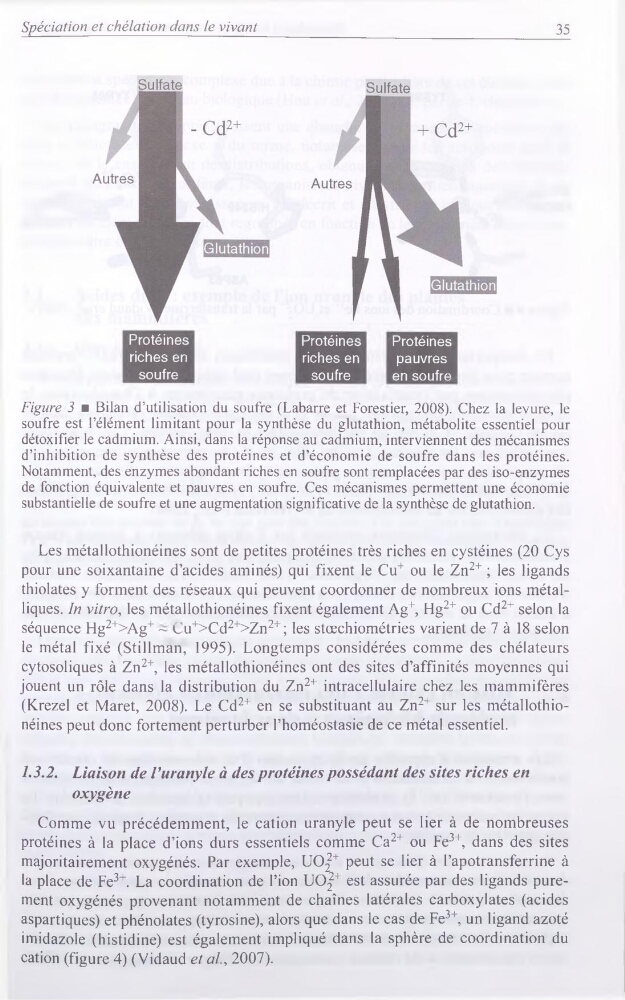
Figure 3 ■ Bilan d’utilisation du soufre (Labarre et Forestier, 2008). Chez la levure, le
soufre est l’élément limitant pour la synthèse du glutathion, métabolite essentiel pour
détoxifier le cadmium. Ainsi, dans la réponse au cadmium, interviennent des mécanismes
d’inhibition de synthèse des protéines et d’économie de soufre dans les protéines.
Notamment, des enzymes abondant riches en soufre sont remplacées par des iso-enzymes
de fonction équivalente et pauvres en soufre. Ces mécanismes permettent une économie
substantielle de soufre et une augmentation significative de la synthèse de glutathion.
Les métallothionéines sont de petites protéines très riches en cystéines (20 Cys
pour une soixantaine d’acides aminés) qui fixent le Cu+ ou le Zn2+ ; les ligands
thiolates y forment des réseaux qui peuvent coordonner de nombreux ions métalliques. In vitro, les métallothionéines fixent également Ag+, Hg2+ ou Cd2+ selon la
séquence Hg2+>Ag+ ~ Cu+>Cd2+>Zn2+; les stœchiométries varient de 7 à 18 selon
le métal fixé (Stillman, 1995). Longtemps considérées comme des chélateurs
cytosoliques à Zn2+, les métallothionéines ont des sites d’affinités moyennes qui
jouent un rôle dans la distribution du Zn2+ intracellulaire chez les mammifères
(Krezel et Maret, 2008). Le Cd2+ en se substituant au Zn2+ sur les métallothionéines peut donc fortement perturber l’homéostasie de ce métal essentiel.
1.3.2. Liaison de Pur any le à des protéines possédant des sites riches en
oxygène
Comme vu précédemment, le cation uranyle peut se lier à de nombreuses
protéines à la place d’ions durs essentiels comme Ca2+ ou Fe3+, dans des sites
majoritairement oxygénés. Par exemple, UO22+ peut se lier à l’apotransferrine à
la place de Fe3+. La coordination de l’ion UO|+ est assurée par des ligands purement oxygénés provenant notamment de chaînes latérales carboxylates (acides
aspartiques) et phénolates (tyrosine), alors que dans le cas de Fe3+, un ligand azoté
imidazole (histidine) est également impliqué dans la sphère de coordination du
cation (figure 4) (Vidaud et al., 2007).