

Philippe GROS L'espace dans les modèles de dynamique des populations
16
• Modèle intégro-différentiel approché par le modèle de réaction-diffusion.
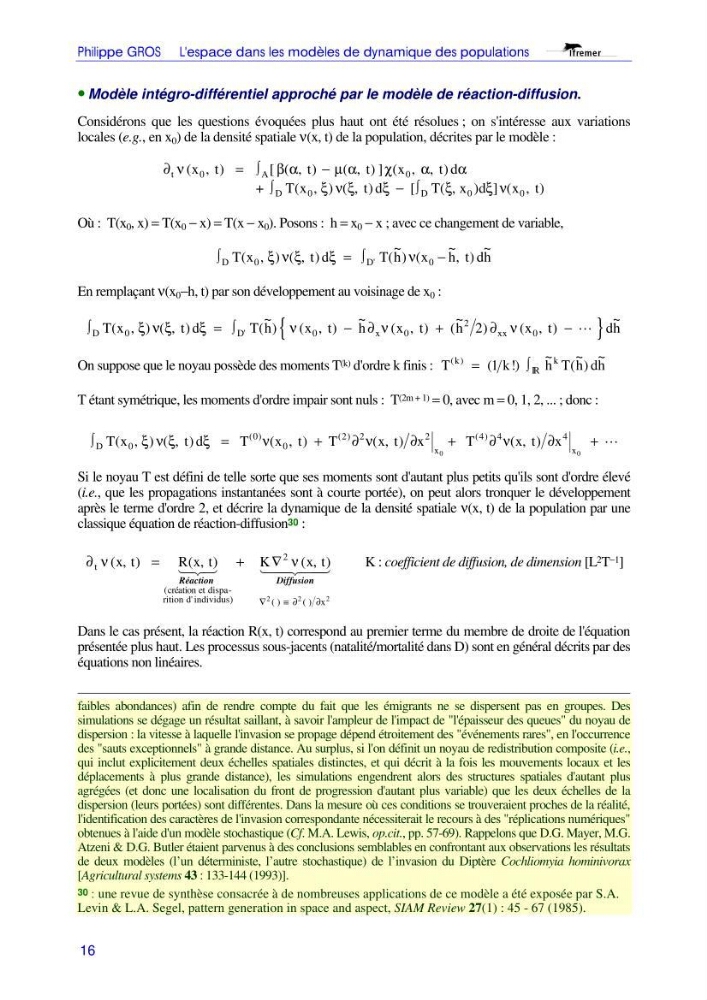
Considérons que les questions évoquées plus haut ont été résolues ; on s'intéresse aux variations
locales (e.g., en x 0 ) de la densité spatiale ν(x, t) de la population, décrites par le modèle :
∂ ν
β α
µ α
χ
α
α
ξ ν ξ
ξ
ξ
ξ ν
t
A
x
x
d
T x
d
T x d
x
t
t
t
t
+
t
[
t
D
D
( , )
[ ( , )
( , ) ] ( , , )
( , ) ( , )
( , ) ] ( , )
0
0
0
0
0
= ∫
−
∫
− ∫
Où : T(x 0 , x) = T(x 0 − x) = T(x − x 0 ). Posons : h = x 0 − x ; avec ce changement de variable,
∫
= ∫
−
D
t
t
T x
d
T h x h dh
D
( , ) ( , )
(
~ ) (
~
, )
~
'
0
0
ξ ν ξ
ξ
ν
En remplaçant ν(x 0 −h, t) par son développement au voisinage de x 0 :
{
}
∫
= ∫
−
+
−
D
t
t
t
t
T x
d
T h
x
h
x
h
x
dh
D
x
xx
( , ) ( , )
(
~ )
( , )
~
( , )
(
~ )
( , )
~
'
0
0
0
2
0
2
ξ ν ξ
ξ
ν
∂ ν
∂ ν
L
On suppose que le noyau possède des moments T (k) d'ordre k finis : T
k
h T h dh
k
IR
k
( )
( !)
~ (
~ )
~
=
∫
1
T étant symétrique, les moments d'ordre impair sont nuls : T (2m + 1) = 0, avec m = 0, 1, 2, ... ; donc :
∫
=
+
+
+
D
t
T
t
T
t
T
t
T x
d
x
x
x
x
x
x
x
( , ) ( , )
( , )
( , )
( , )
( )
( )
( )
0
0
0
2 2
2
4 4
4
0
0
ξ ν ξ
ξ
ν
∂ ν
∂
∂ ν
∂
L
Si le noyau T est défini de telle sorte que ses moments sont d'autant plus petits qu'ils sont d'ordre élevé
(i.e., que les propagations instantanées sont à courte portée), on peut alors tronquer le développement
après le terme d'ordre 2, et décrire la dynamique de la densité spatiale ν(x, t) de la population par une
classique équation de réaction-diffusion 30 :
∂ ν
ν
∂
∂
t
création et dispa
rition d individus
x
x t
R x t
K
x t
-
( )
( )
( , )
( , )
( , )
(
'
)
=
+
∇
∇
≡
Réaction
Diffusion
123
1 2
4 4
3
4 4
2
2
2
2
K : coefficient de diffusion, de dimension [L 2 T −1 ]
Dans le cas présent, la réaction R(x, t) correspond au premier terme du membre de droite de l'équation
présentée plus haut. Les processus sous-jacents (natalité/mortalité dans D) sont en général décrits par des
équations non linéaires.
faibles abondances) afin de rendre compte du fait que les émigrants ne se dispersent pas en groupes. Des
simulations se dégage un résultat saillant, à savoir l'ampleur de l'impact de "l'épaisseur des queues" du noyau de
dispersion : la vitesse à laquelle l'invasion se propage dépend étroitement des "événements rares", en l'occurrence
des "sauts exceptionnels" à grande distance. Au surplus, si l'on définit un noyau de redistribution composite (i.e.,
qui inclut explicitement deux échelles spatiales distinctes, et qui décrit à la fois les mouvements locaux et les
déplacements à plus grande distance), les simulations engendrent alors des structures spatiales d'autant plus
agrégées (et donc une localisation du front de progression d'autant plus variable) que les deux échelles de la
dispersion (leurs portées) sont différentes. Dans la mesure où ces conditions se trouveraient proches de la réalité,
l'identification des caractères de l'invasion correspondante nécessiterait le recours à des "réplications numériques"
obtenues à l'aide d'un modèle stochastique (Cf. M.A. Lewis, op.cit., pp. 57-69). Rappelons que D.G. Mayer, M.G.
Atzeni & D.G. Butler étaient parvenus à des conclusions semblables en confrontant aux observations les résultats
de deux modèles (l’un déterministe, l’autre stochastique) de l’invasion du Diptère Cochliomyia hominivorax
[Agricultural systems 43 : 133-144 (1993)].
30 : une revue de synthèse consacrée à de nombreuses applications de ce modèle a été exposée par S.A.
Levin & L.A. Segel, pattern generation in space and aspect, SIAM Review 27(1) : 45 - 67 (1985).