

7 - La capacité biotique des bassins ostréicoles
27
Le modèle de transport est calé à l'aide des séries chronologiques de salinité aux
frontières et au centre du bassin.
Le couplage du modèle de transport et du modèle biologique se fait en
introduisant dans chaque boîte la biomasse présente et sa composition en classes d'âge.
Les compétiteurs les plus importants - moule, coque, palourde - sont introduits comme
variables forçantes (Sauriau 1986). Leur effet sera fonction de leur biomasse et de leur
taux spécifique d'assimilation unitaire ; les estimations de ces taux sont tirées de la
littérature. Le modèle simule les croissances individuelles des huîtres dans les différents
secteurs du bassin. Il aboutit à la conclusion que les compétiteurs jouent un rôle
négligeable, ce qui n'est pas pour surprendre compte tenu de la faiblesse des biomasses
des populations sauvages par rapport à celle du cheptel cultivé.
1 1 1—I—1 1—1—I—| 1 1—|—! 1—| 1 1 1 1 1—| 1 1—] 1 1 1 1—]
50
100
140
Biommasse totale (en milliers de tonnes)
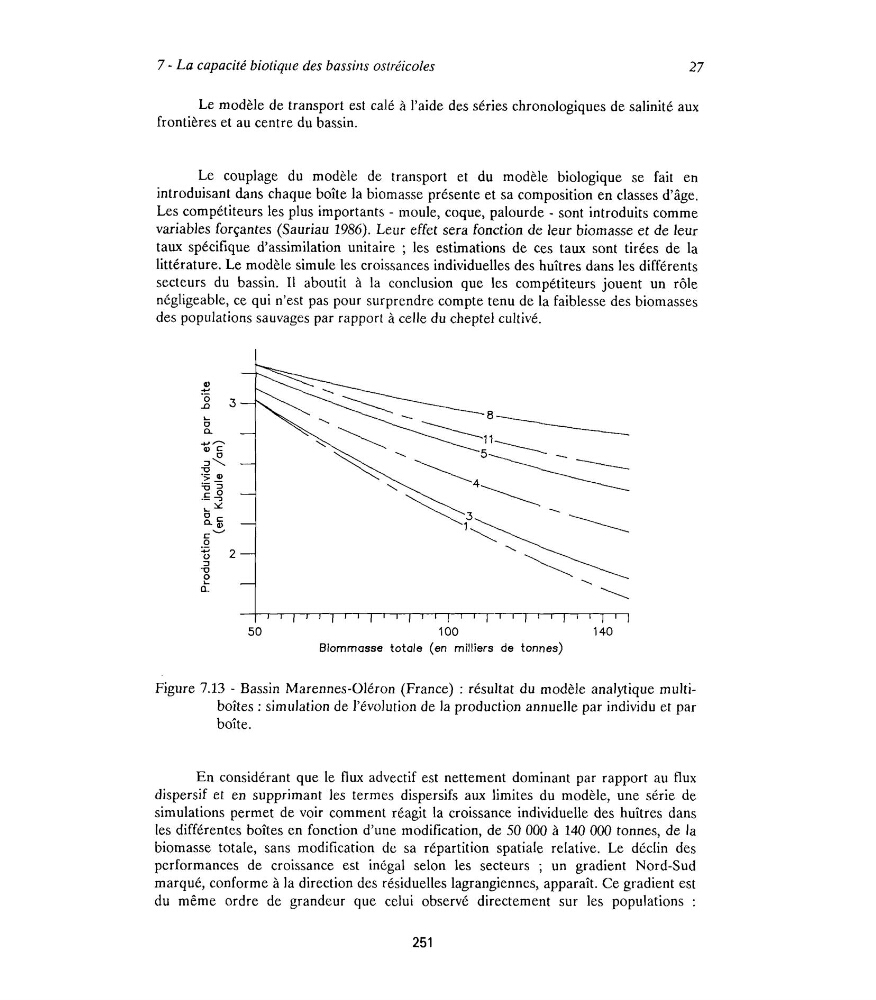
Figure 7.13 - Bassin Marennes-Oléron (France) : résultat du modèle analytique multibuses : simulation de l'évolution de la production annuelle par individu et par
boîte.
En considérant que le flux advectif est nettement dominant par rapport au flux
dispersif et en supprimant les termes dispersifs aux limites du modèle, une série de
simulations permet de voir comment réagit la croissance individuelle des huîtres dans
les différentes boîtes en fonction d'une modification, de 50 000 à 140 000 tonnes, de la
biomasse totale, sans modification de sa répartition spatiale relative. Le déclin des
performances de croissance est inégal selon les secteurs ; un gradient Nord-Sud
marqué, conforme à la direction des résiduelles lagrangiennes, apparaît. Ce gradient est
du même ordre de grandeur que celui observé directement sur les populations :
251