

6 - Les détenninants du recrutement
3
l'anchois de Californie (Engraulis mordax) le fait 4 jours après Péclosion ; et la morue
(Gadus inorhua) à peu près au cinquième jour, à 7 °C (Theilacker and Dorsey 1980).
Un trait important de la dynamique des populations aquatiques est la variabilité
du recrutement annuel (chapitre 4). Chez certains stocks, dont les clupéidés ou les
bivalves (chapitre 9), cette variabilité est élevée : même en l'absence d'exploitation, les
stocks peuvent passer par une succession de déclins et de proliférations. La variabilité
des populations aquatiques est mieux documentée chez les stocks exploités, mais des
analyses de sédiments montrent que ces successions de hauts et de bas existaient
également avant toute pêche commerciale (Soutar and Isaacs 1974, De Vries and
Pearcy 1982). La figure 6.1, représente l'évolution de l'indice d'abondance, calculé par
Soutar et Isaacs, pour les populations de poissons dominantes au large de la Californie.
Cet indice est calculé à partir du dénombrement des écailles présentes dans les
sédiments anaérobiques du bassin californien. La fréquence d'écaillés par niveaux
sédimentaires montre clairement, qu'il y a une centaine d'années, alors que ces espèces
n'étaient pas encore pêchées commercialement, l'effectif des populations variait
considérablement d'une période à une autre. Il en est de même de leur abondance
totale. Il est donc clair, qu'indépendamment de la pêche, l'environnement peut
influencer de façon marquée l'abondance des populations halieutiques.
12.5
VI 0.0
eu
c
c
o
r 7.5
o
CO
» 5.0
n
CL
O
0
2.5
0
1960
1965
1970
1975
Années
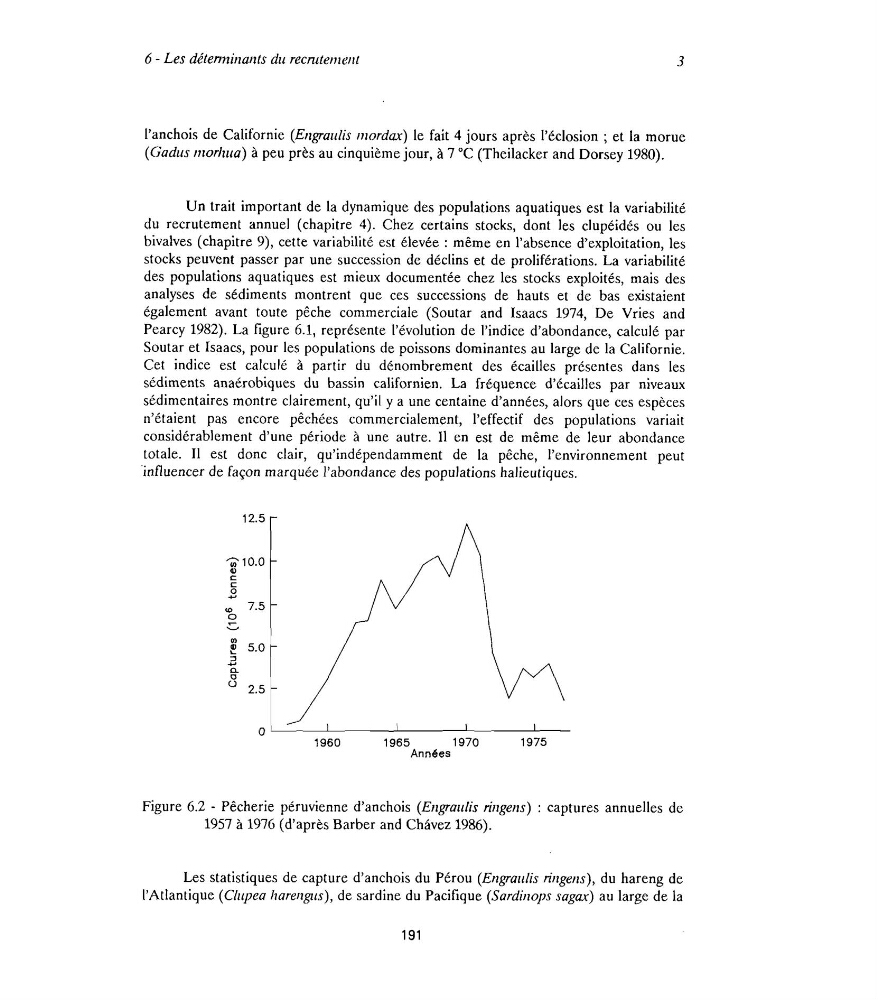
Figure 6.2 - Pêcherie péruvienne d'anchois (Engraulis ringens) : captures annuelles de
1957 à 1976 (d'après Barber and Châvez 1986).
Les statistiques de capture d'anchois du Pérou [Engraulis ringens), du hareng de
l'Atlantique (Clupea harengus), de sardine du Pacifique (Sardinops sagax) au large de la
191