

Substrat
Activité
Rendement
Rendement théorique
Sulfure
15,2
0,71
4
Thiosulfate
6,3
0,45
4
Acétate
7,3
0,16
4
Propionate
1,7
0,05
7
Lactate
4,6
0,10
6
Succinate
10,4
0,23
7
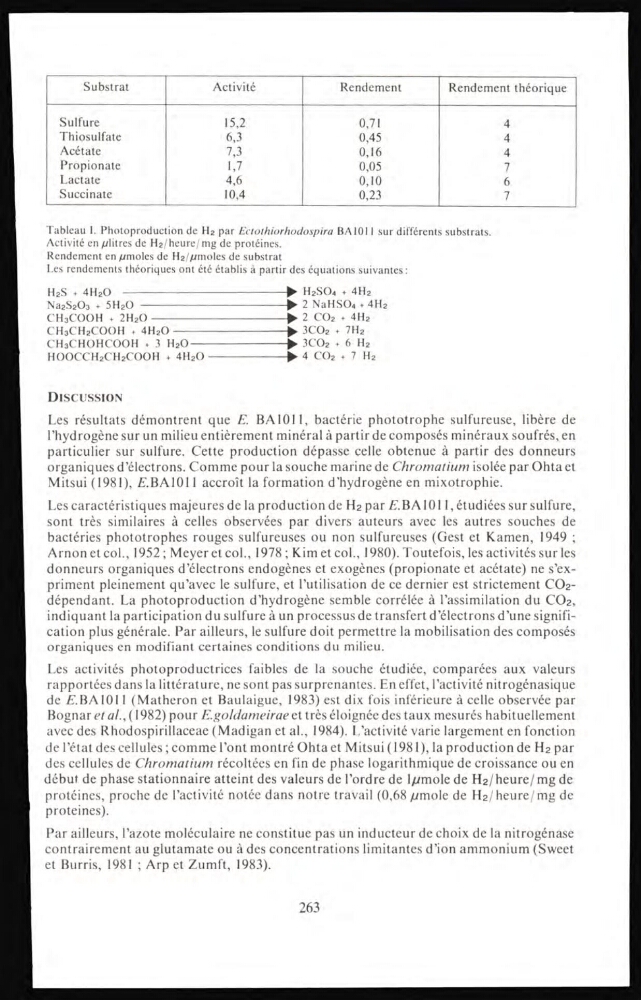
Tableau I. Photoproduction de H 2 par Ectothiorhodospira BA1011 sur différents substrats.
Activité en µlitres de H 2 /heure/mg de protéines.
Rendement en µmoles de H 2 / µmoles de substrat
Les rendements théoriques ont été établis à partir des équations suivantes :
H 2 S ♦ 4H 2 O
Na 2 S 2 O 3 + 5H 2 O
CH3COOH + 2H 2 O
CH3CH2COOH + 4H 2 O
CH3CHOHCOOH + 3 H 2 O —
HOOCCH2CH2COOH + 4H 2 O
H2SO4 + 4H 2
> 2 NaHSO 4 +4H 2
> 2 CO 2 + 4H 2
> 3CO 2 + 7H 2
> 3CO 2 + 6 H 2
> 4 CO 2 + 7 H 2
DISCUSSION
Les résultats démontrent que E. B A1011, bactérie phototrophe sulfureuse, libère de
l’hydrogène sur un milieu entièrement minéral à partir de composés minéraux soufrés, en
particulier sur sulfure. Cette production dépasse celle obtenue à partir des donneurs
organiques d’électrons. Comme pour la souche marine de Chromatium isolée par Ohta et
Mitsui (1981), E.BA1011 accroît la formation d’hydrogène en mixotrophie.
Les caractéristiques majeures de la production de H 2 par E.BA1011 , étudiées sur sulfure,
sont très similaires à celles observées par divers auteurs avec les autres souches de
bactéries phototrophes rouges sulfureuses ou non sulfureuses (Gest et Kamen, 1949 ;
Arnon et col., 1952 ; Meyer et col., 1978 ; Kim et col., 1980). Toutefois, les activités sur les
donneurs organiques d’électrons endogènes et exogènes (propionate et acétate) ne s’expriment pleinement qu’avec le sulfure, et l’utilisation de ce dernier est strictement CO2dépendant. La photoproduction d’hydrogène semble corrélée à l’assimilation du CO2,
indiquant la participation du sulfure à un processus de transfert d’électrons d’une signification plus générale. Par ailleurs, le sulfure doit permettre la mobilisation des composés
organiques en modifiant certaines conditions du milieu.
Les activités photoproductrices faibles de la souche étudiée, comparées aux valeurs
rapportées dans la littérature, ne sont pas surprenantes. En effet, l’activité nitrogénasique
de E. BA1011 (Matheron et Baulaigue, 1983) est dix fois inférieure à celle observée par
Bognar et al., ( 1982) pour E.goldameirae et très éloignée des taux mesurés habituellement
avec des Rhodospirillaceae (Madigan et al., 1984). L’activité varie largement en fonction
de l’état des cellules ; comme l’ont montré Ohta et Mitsui (1981), la production de H 2 par
des cellules de Chromatium récoltées en fin de phase logarithmique de croissance ou en
début de phase stationnaire atteint des valeurs de l’ordre de 1µmole de H 2 /heure/mg de
protéines, proche de l’activité notée dans notre travail (0,68 µmole de H 2 /heure/mg de
proteines).
Par ailleurs, l’azote moléculaire ne constitue pas un inducteur de choix de la nitrogénase
contrairement au glutamate ou à des concentrations limitantes d’ion ammonium (Sweet
et Burris, 1981 ; Arp et Zumft, 1983).
263