

le temps de doublement cellulaire est de 1 à 2 heures et se situe parmi les temps de
génération les plus courts observés en milieu naturel (Sieburth et Lavoie 1978). Cette
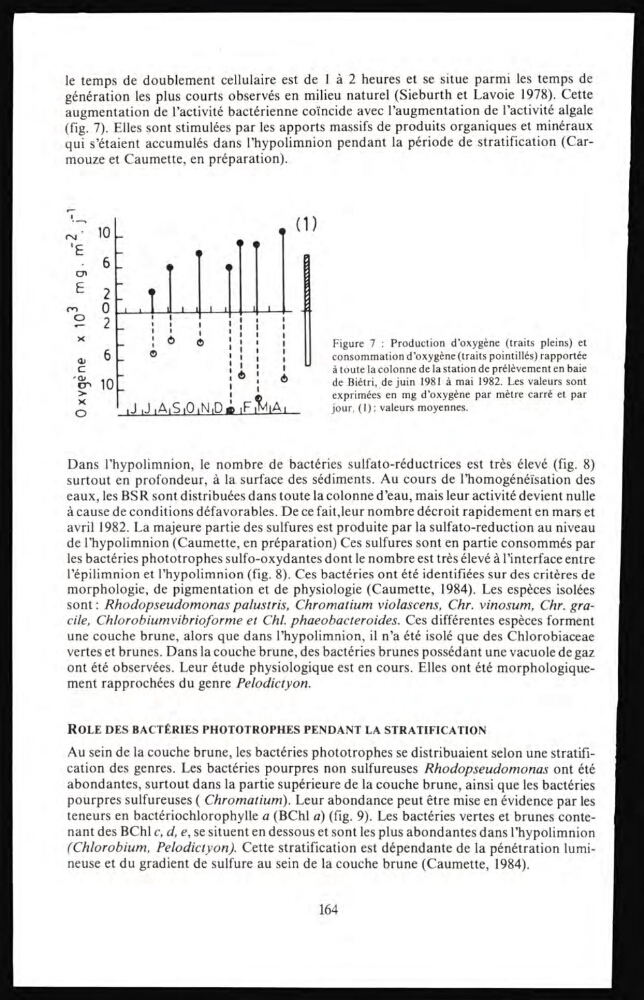
augmentation de l’activité bactérienne coïncide avec l’augmentation de l’activité algale
(fig. 7). Elles sont stimulées par les apports massifs de produits organiques et minéraux
qui s’étaient accumulés dans l’hypolimnion pendant la période de stratification (Carmouze et Caumette, en préparation).
Figure 7 : Production d’oxygène (traits pleins) et
consommation d’oxygène (traits pointillés) rapportée
à toute la colonne de la station de prélèvement en baie
de Biétri, de juin 1981 à mai 1982. Les valeurs sont
exprimées en mg d’oxygène par mètre carré et par
jour. (1): valeurs moyennes.
Dans l’hypolimnion, le nombre de bactéries sulfato-réductrices est très élevé (fig. 8)
surtout en profondeur, à la surface des sédiments. Au cours de l’homogénéisation des
eaux, les BSR sont distribuées dans toute la colonne d’eau, mais leur activité devient nulle
à cause de conditions défavorables. De ce fait, leur nombre décroit rapidement en mars et
avril 1982. La majeure partie des sulfures est produite par la sulfato-reduction au niveau
de l’hypolimnion (Caumette, en préparation) Ces sulfures sont en partie consommés par
les bactéries phototrophes sulfo-oxydantes dont le nombre est très élevé à l’interface entre
l’épilimnion et l’hypolimnion (fig. 8). Ces bactéries ont été identifiées sur des critères de
morphologie, de pigmentation et de physiologie (Caumette, 1984). Les espèces isolées
sont : Rhodopseudomonas palustris, Chromatium violascens, Chr. vinosum, Chr. gracile, Chlorobiumvibrioforme et Chl. phaeobacteroides. Ces différentes espèces forment
une couche brune, alors que dans l'hypolimnion, il n’a été isolé que des Chlorobiaceae
vertes et brunes. Dans la couche brune, des bactéries brunes possédant une vacuole de gaz
ont été observées. Leur étude physiologique est en cours. Elles ont été morphologiquement rapprochées du genre Pelodictyon.
ROLE DES BACTÉRIES PHOTOTROPHES PENDANT LA STRATIFICATION
Au sein de la couche brune, les bactéries phototrophes se distribuaient selon une stratification des genres. Les bactéries pourpres non sulfureuses Rhodopseudomonas ont été
abondantes, surtout dans la partie supérieure de la couche brune, ainsi que les bactéries
pourpres sulfureuses ( Chromatium). Leur abondance peut être mise en évidence par les
teneurs en bactériochlorophylle a (BChl a) (fig. 9). Les bactéries vertes et brunes contenant des BChl c, d, e, se situent en dessous et sont les plus abondantes dans l’hypolimnion
(Chlorobium, Pelodictyon). Cette stratification est dépendante de la pénétration lumineuse et du gradient de sulfure au sein de la couche brune (Caumette, 1984).
164