

Les espèces peuvent être contraintes par la capacité d’accueil du milieu qui
induit des relations entre elles et régule leur dt'namique. Dans ce cas, les
compensations entre espèces peuvent se traduire par une faible variabilité
de biomasse totale comparée à la variabilité des espèces.
Matériel et méthodes
Les données utdlisées sont issues de campagnes scientdfiques de chalutage
de fond (Evhoe) menècs par l’Ifremer dans lc golfe de Gascogne entre
1987 et 1995.
In structure de diversité dépend pour partie du type de dynamique à
l’œuvre dans le peuplement, telles les perturbations ou les interactdons entre espèces (Huston, 1994). Les variations de la diversité et de la biomasse
sont analysées pour trois assemblages d’espèces définis selon les travaux de
Poulard & Boucher (1997) : côtier (0-50 m), plateau (50-150 m) et pente
continentale (profondeur supérieure à 150 m). Les indices de diversité de
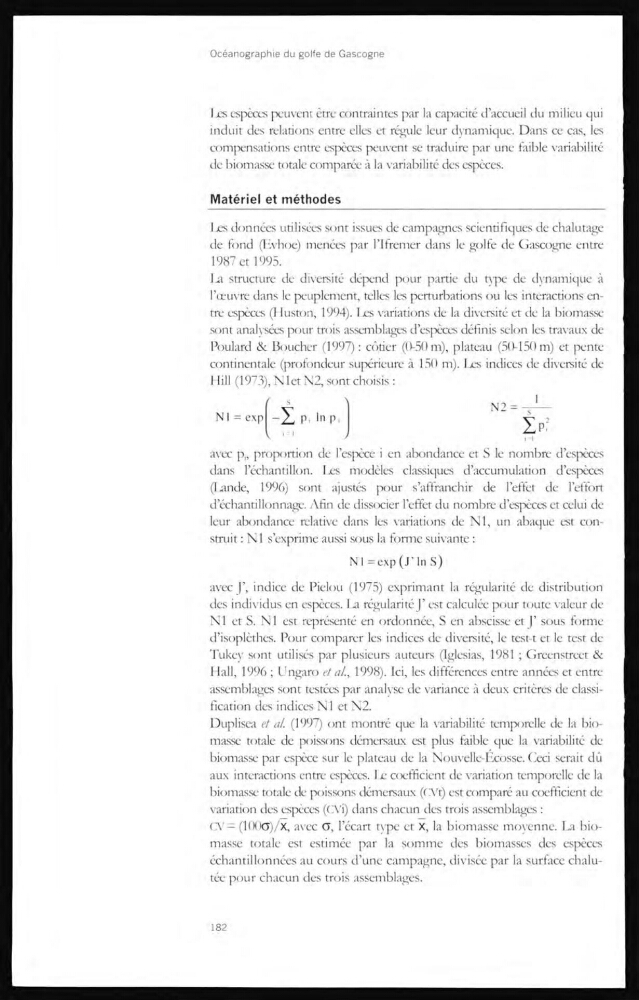
Hill (1973), N1 et N2, sont choisis :
avec p„ proportion de l’espèce i en abondance et S le nombre d’espèces
dans l’échantillon. Les modèles classiques d’accumulation d’espèces
(Lande, 1996) sont ajustés pour s’affranchir de l’effet de l’effort
d’échantillonnage. Afin de dissocier l’effet du nombre d’espèces et celui de
leur abondance relative dans les variations de Nl, un abaque est construit : N1 s’exprime aussi sous la forme suivante :
N 1 = exp ( J ' ln S)
avec J’, indice de Pielou (1975) exprimant la régularité de distribution
des individus en espèces. La régularité J’ est calculée pour toute valeur de
N1 et S. N1 est représenté en ordonnée, S en abscisse et J’ sous forme
d’isoplèthes. Pour comparer les indices de diversité, le test-t et le test de
Tukey sont utilisés par plusieurs auteurs (Iglesias, 1981 ; Greenstreet &
Hall, 1996 ; Ungaro et al, 1998). Ici, les différences entre années et entre
assemblages sont testées par analyse de variance à deux critères de classification des indices N1 et N2.
Duplisea et al. (1997) ont montré que la variabilité temporelle de la biomasse totale de poissons démersaux est plus faible que la variabilité de
biomasse par espèce sur le plateau de la Nouvelle-Écosse. Ceci serait dû
aux interactions entre espèces. Le coefficient de variation temporelle de la
biomasse totale de poissons démersaux (CVt) estcomparé au coefficient de
variation des espèces (CVi) dans chacun des trois assemblages :
CV= (100o)/x, avec O, l’écart type et X, la biomasse moyenne. La biomasse totale est estimée par la somme des biomasses des espèces
échantillonnées au cours d’une campagne, divisée par la surface chalutée pour chacun des trois assemblages.
182