

Afin d’analyser le polymorphisme de séquence du gène mitochondrial du
cytochrome b, nous avons purifié par amplification génique (PCR), grâce à des
amorces nucléotidiques spécifiques, une portion de 970 pb correspondant à
la presque-totalité de ce gène (1123 pb ; fig. 2). L’amplification a été réalisée
sur l’ADN total de différents oiseaux d’Atlantique et de Méditerranée. Chaque
fragment obtenu a été séquencé sur séquenceur automatique.
Résultats
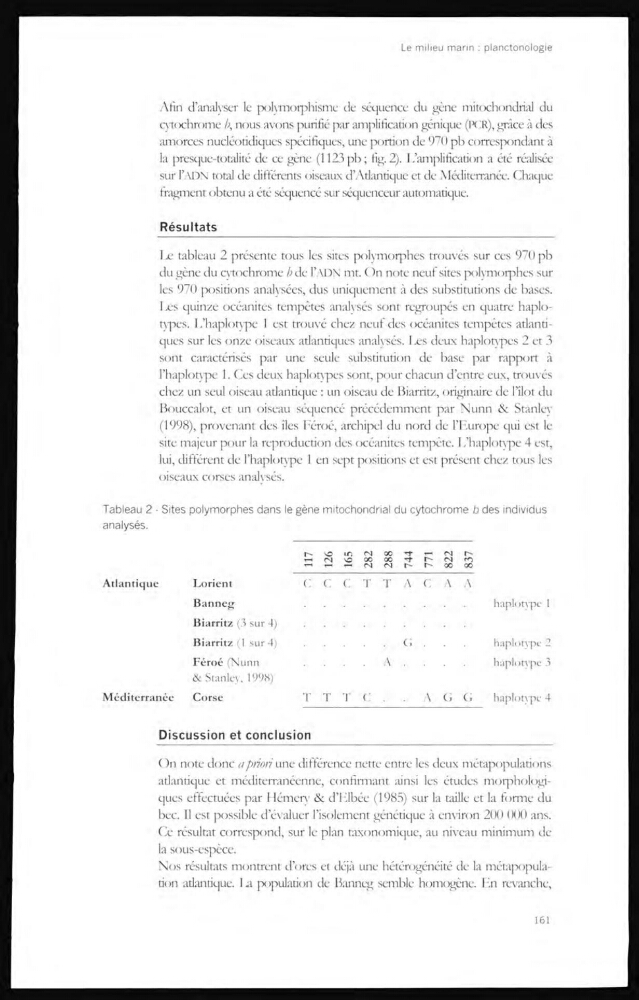
Le tableau 2 présente tous les sites polymorphes trouvés sur ces 970 pb
du gène du cvtochrome b de l’ADN mt. ( )n note neuf sites polymorphes sur
les 970 positions analysées, dus uniquement à des substitutions de bases.
Ixs quinze océanites tempêtes analysés sont regroupés en quatre haplotypes. L’haplotype 1 est trouvé chez neuf des océanites tempêtes atlantiques sur les onze oiseaux atlantiques analysés. Les deux haplotypies 2 et 3
sont caractérisés par une seule substitution de base par rapport à
l’haplotype 1. Ces deux haplotvpes sont, pour chacun d’entre eux, trout és
chez un seul oiseau atlantique : un oiseau de Biarritz, originaire de l’îlot du
Bouccalot, et un oiseau séquencé précédemment par Nunn & Stanlev
(1998), provenant des îles heroc, archipel du nord de l’Lurope qui est le
site majeur pour la reproduction des océanites tempête. L’haplotype 4 est,
lui, différentde l’haplotype 1 en sept posirions et est présent chez tous les
oiseaux corses analysés.
Tableau 2 - Sites polymorphes dans le gène mitochondrial du cytochrome b des individus
analysés.
Atlantique
Lorient
rc
VO fN
c
un
o
c
CH
00
rq
T
00
oo
(N
T
■'t
Tt rA
ILL u
> 822
rrn oo
A
Banneg
haplotype 1
Biarritz (3 sur 4)
Biarritz (1 sur 4)
G
haplotype 2
Féroé (Nunn
A
haplotype 3
Méditerranée
& Stanley, 1998)
Corse
T T T C
A G c,
haplotvpe 4
Discussion et conclusion
( )n note donc a priori une différence nette entre les deux métapopulations
atlantiquc et méditerranéenne, confirmant ainsi les études morphologiques effectuées par Hémcry & d’Llbée (1985) sur la taille et la forme du
bec. II est possible d’évaluer l’isolement génétique à environ 200 000 ans.
Ce résultat correspond, sur le plan taxonomique, au niveau minimum de
la sous-espèce.
Nos résultats montrent d’ores et déjà une hétérogénéité de la métapopulation atlantique. Ia population de Banneg semble homogène. Ln revanche,
161