

Une très légère toxici té a été constatée pour des
particules du mili eu de culture comprises entre
0,2 et 81Jm ; elle ne peut que provenir soit de bactéries présentes dans le milieu, soit de débris
algaux con tenant encore la tox ine.
Un traitement aux antibiotiques du clone PmB non
entièremen t efficace a contribué à modifier l'expression de la toxicité en la retardant et l'affa iblissant. Par contre, un clone PmS1 rendu axénique
n'a pas perdu sa tox icité, bien qu'affaiblie. On ne
peut donc exclu re la participation de bactéries
dans la production de la toxine. Cependant, la parti cipation directe de bactéries endosymb iontes ne
semble pas devoir être retenue, car une recherche
intensive en microscopie électron ique n' a pas permi s d' observer la présence de bactéries ou de
formes bactéroïdes dans le cytoplasme ou le noyau
de P. minimum. Par contre, un rôle inducteur ou/et
transformateur des bactéri es externes fixées ou
libres dans le mil ieu est envisageable. Cela demande cependant à être confirmé et précisé.
Caractéristiques écophysiologiques
Facteurs physiques
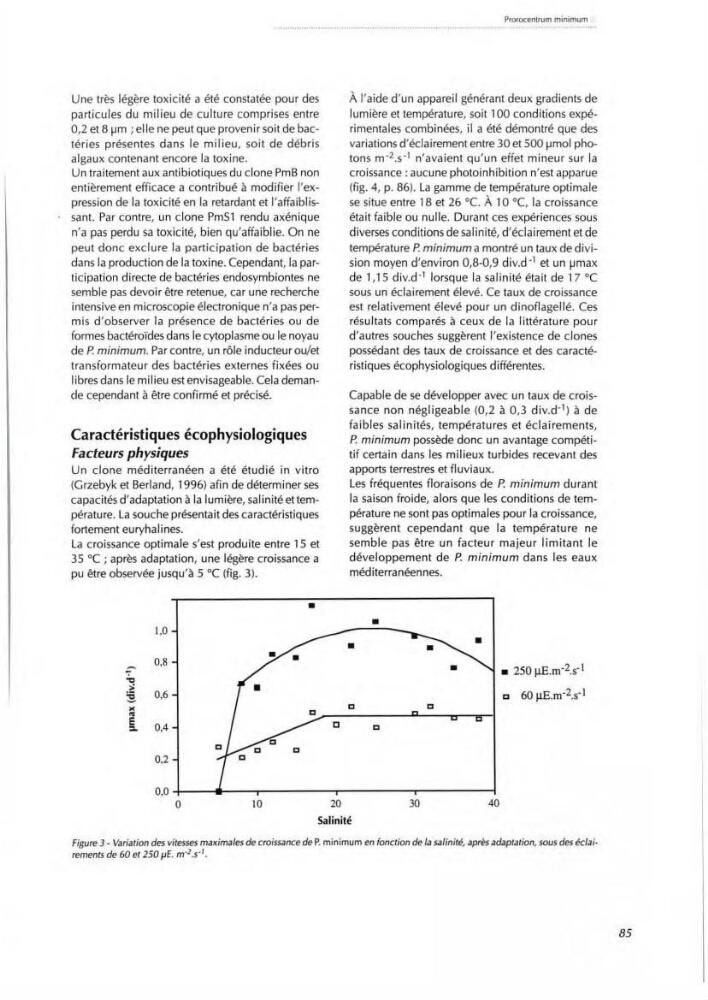
Un clone méditerranéen a été étudié in vitro
(Grzebyk et Berland, 1996) afin de déterminer ses
capacités d'adaptation à la lumière, salinité et température. La souche présentait des caractéristiques
fortement euryhalines.
La croissance optimale s' est produite entre 15 et
35 oc ; après adaptation, une légère croissance a
pu être observée jusqu'à 5 oc (fig. 3).
•
1,0
~
0,8
"0
>
~
0,6
)(
~
E
0,4
:1
0,2
0,0
0
JO
20
Prorocenlrum minimum
À l' aide d' un appareil générant deux gradients de
lumière et température, soi t 100 conditions expérimentales combinées, il a été démontré que des
variations d'éclairement entre 30 et 500 1-1mol photon s m · 2 .s- 1 n' avaient qu ' un effet mineur sur la
c roissance: aucune photoinhibition n'est apparue
(fig. 4, p. 86). La gamme de températu re optimale
se situe entre 18 et 26 °C. À 1 0 °C, la croi ssance
était faibl e ou nul le. Du rant ces expériences sous
diverses conditions de sa linité, d'éclairement et de
température P. minimum a montré un taux de division moyen d'environ 0,8-0,9 div.d ·
1 et un IJmax
de 1,15 div.d ·
1 lorsque la sa linité était de 17 oc
sous un écla irement élevé. Ce taux de croissance
est relativement élevé pour un dinoflagellé. Ces
résultats comparés à ceux de la littérature pour
d'autres souches suggèrent l'ex istence de c lones
possédant des taux de croissance et des caractéristiques écophysiologiques différentes.
Capable de se développer avec un taux de croissance non négligeable (0,2 à 0,3 div. d- 1 ) à de
fa ibles salinités, températures et éclairements,
P. minimum possède donc un avantage compétiti f certain dans les milieux turbides recevant des
apports terrestres et fl uviaux.
Les fréquentes floraisons de P. minimum durant
la saison froide, alors que les conditions de température ne sont pas optimales pour la croissance,
suggèrent cependant que la température ne
semb le pas être un fa cteur maj eur limitant le
développement de P. minimum d ans les eaux
méditerranéennes.
•
30
40
• 250 ~.m2
.s1
c 60 jlE.m- 2 .s· 1
Salinité
Figure 3- Variation des vitesses maximales de croissance de P. minimum en fonction de la salinité, après adaptation, sous des éclairements de 60 et 250 pE. m· 1 .s· 1 •
85