

Dinoflagellés
DLM
Cl 50
G. toxicus
2
6,9 (*)
P. lima
75
25,5 (**)
A. carterae
225
10-200 (*)
A. klebsii
200
3,2 -59 (?)
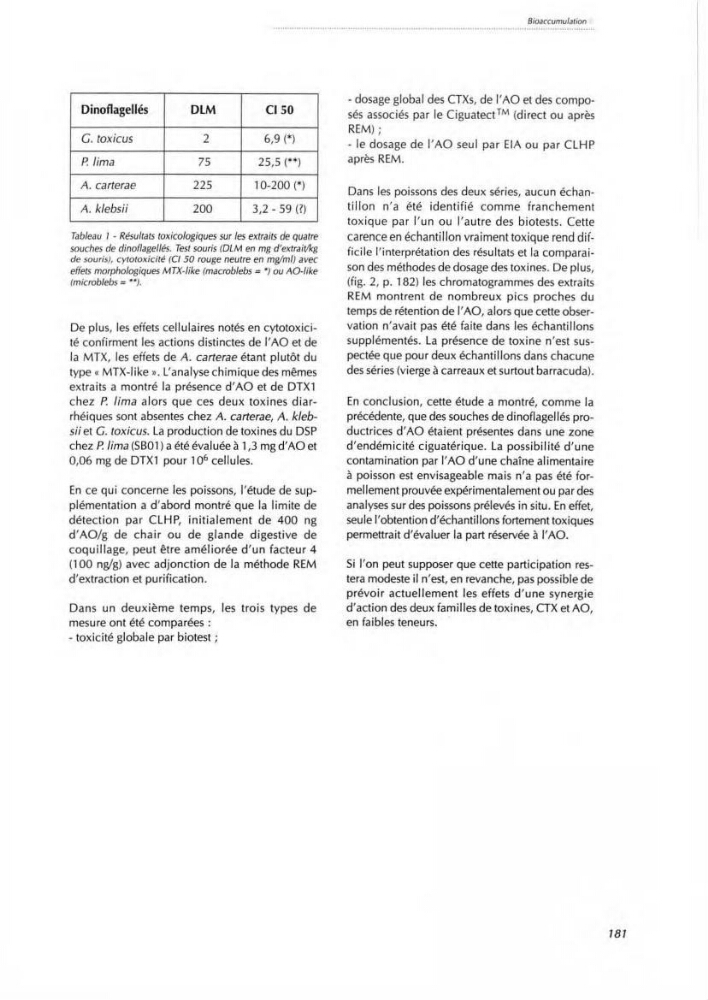
Tableau 1 - Résultats toxicologiques sur les extraits de quatre
souches de dinoflagel/és. Test souris (OLM en mg d'extrait/kg
de souris}, cytotoxicité (Cl 50 rouge neutre en mg/ml) avec
effets morphologiques MTX-Iike (macroblebs = •J ou AO-Iike
(microblebs = *').
De plus, les effets cellulaires notés en cytotoxicité confirment les actions distinctes de l' AO et de
la MTX, les effets de A. carterae étant plutôt du
type « MTX-Iike "· L'analyse chimique des mêmes
extraits a montré la présence d'AO et de DTX1
chez P. lima alors que ces deux toxines diarrhéiques sont absentes chez A. carterae, A. klebsii et G. toxicus. La production de toxines du DSP
chez P. lima (SB01) a été éva luée à 1,3 mg d'AO et
0,06 mg de DTX1 pour 10 6 cellules.
En ce qui concerne les poissons, l' étude de supplémentation a d' abord montré q ue la limite de
détection par CL HP, initialement de 400 ng
d' AO/g de chair ou de glande digestive de
coqui llage, peut être améliorée d'un facteur 4
(1 00 ng/g) avec adjonction de la méthode REM
d'extraction et purification.
Dans un deuxième temps, les trois types de
mesure ont été comparées :
- toxicité globale par biotest ;
Bioaccumulation
-dosage global des CTXs, de I'AO et des composés associés par le Ciguatect ™ (direct ou après
REM) ;
-le dosage de I'AO seul par ElA ou par CL HP
après REM.
Dans les poissons des deux séries, aucun échantillon n'a été identifié comme franchement
toxique par l' un ou l'autre des biotests. Cette
carence en échantillon vraiment toxique rend diffici le l' interprétation des résultats et la comparaison des méthodes de dosage des toxines. De plus,
(fig. 2, p. 182) les chromatogrammes des extraits
REM montrent de nombreux pics proches du
temps de rétention de l' AO, alors que cette observation n' avait pas été faite dans les échantillons
supplémentés. La présence de toxine n' est suspectée que pour deux échantillons dans chacu ne
des séries (vierge à carreaux et surtout barracuda).
En conclusion, cette étude a montré, comme la
précédente, que des souches de dinoflagellés productrices d' AO étaient présen tes dans une zone
d 'endémic ité ciguatérique. La possibilité d' une
contamination par I'AO d'une chaîne alimentaire
à poisson est envisageable mais n' a pas été formellement prouvée expérimenta lement ou par des
analyses su r des poissons prélevés in situ. En effet,
seule l'obtention d'échantillons fortement toxiques
permettrait d'évaluer la part réservée à l' AO.
Si l' on peut supposer que cette participation restera modeste il n'est, en revanche, pas possible de
prévoir actuellement les effets d'une synergie
d'action des deux familles de toxines, CTX et AO,
en faibles teneurs.
181