

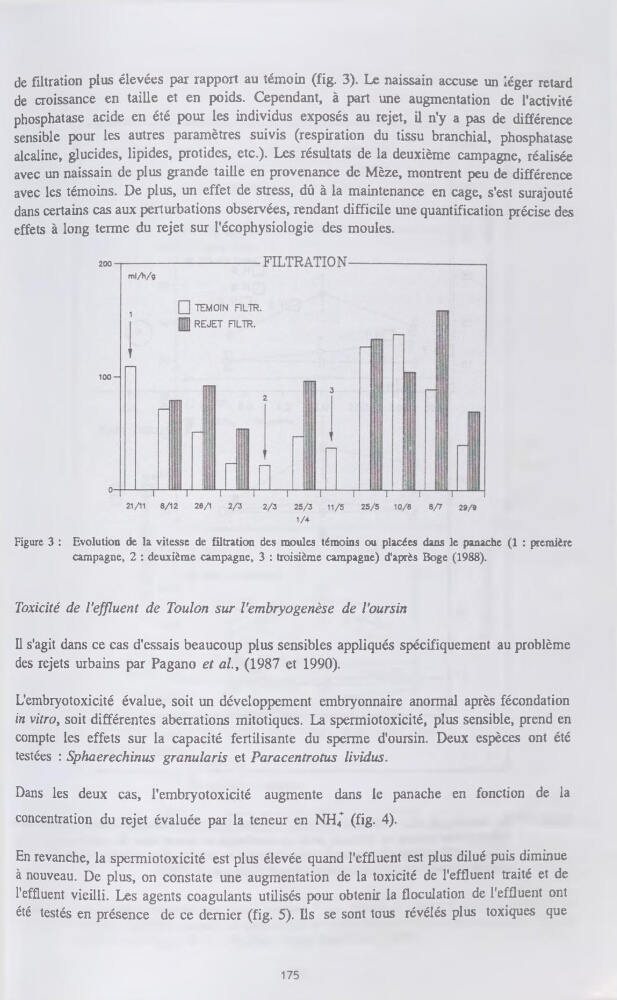
de filtration plus élevées par rapport au témoin (fig. 3). Le naissain accuse un léger retard
de croissance en taille et en poids. Cependant, à part une augmentation de l'activité
phosphatase acide en été pour les individus exposés au rejet, il n'y a pas de différence
sensible pour les autres paramètres suivis (respiration du tissu branchial, phosphatase
alcaline, glucides, lipides, protides, etc.). Les résultats de la deuxième campagne, réalisée
avec un naissain de plus grande taille en provenance de Mèze, montrent peu de différence
avec les témoins. De plus, un effet de stress, dû à la maintenance en cage, s'est surajouté
dans certains cas aux perturbations observées, rendant difficile une quantification précise des
effets à long terme du rejet sur l'écophysiologie des moules.
Figure 3 : Evolution de la vitesse de filtration des moules témoins ou placées dans le panache (1 : première
campagne, 2 : deuxième campagne, 3 : troisième campagne) d'après Boge (1988).
Toxicité de l'effluent de Toulon sur l'embryogenèse de l'oursin
Il s'agit dans ce cas d'essais beaucoup plus sensibles appliqués spécifiquement au problème
des rejets urbains par Pagano et al., (1987 et 1990).
L'embryotoxicité évalue, soit un développement embryonnaire anormal après fécondation
in vitro, soit différentes aberrations mitotiques. La spermiotoxicité, plus sensible, prend en
compte les effets sur la capacité fertilisante du sperme d'oursin. Deux espèces ont été
testées : Sphaerechinus granularis et Paracentrotus lividus.
Dans les deux cas, l'embryotoxicité augmente dans le panache en fonction de la
concentration du rejet évaluée par la teneur en NH4* (fig- 4).
En revanche, la spermiotoxicité est plus élevée quand l'effluent est plus dilué puis diminue
à nouveau. De plus, on constate une augmentation de la toxicité de l'effluent traité et de
l'effluent vieilli. Les agents coagulants utilisés pour obtenir la floculation de l'effluent ont
été testés en présence de ce dernier (fig. 5). Ils se sont tous révélés plus toxiques que
175