

- 127 -
Rcla1
Rrad
Rcla2
Rm ir
Rast1
Rast2
Rm on
Rpol
Rbra1
Rbra2
Doxy1
Doxy2
Arad
S acanthias
99
95
99
6
36
12
51
46
100
79
100
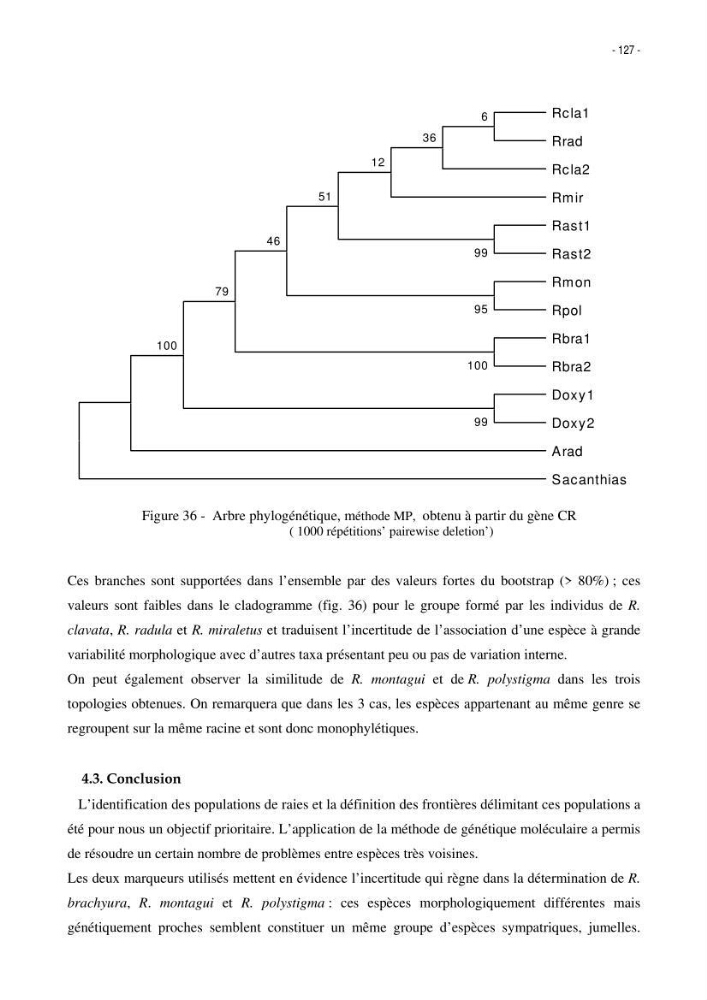
Figure 36 - Arbre phylogénétique, méthode MP, obtenu à partir du gène CR
( 1000 répétitions’ pairewise deletion’)
Ces branches sont supportées dans l’ensemble par des valeurs fortes du bootstrap (> 80%) ; ces
valeurs sont faibles dans le cladogramme (fig. 36) pour le groupe formé par les individus de R.
clavata, R. radula et R. miraletus et traduisent l’incertitude de l’association d’une espèce à grande
variabilité morphologique avec d’autres taxa présentant peu ou pas de variation interne.
On peut également observer la similitude de R. montagui et de R. polystigma dans les trois
topologies obtenues. On remarquera que dans les 3 cas, les espèces appartenant au même genre se
regroupent sur la même racine et sont donc monophylétiques.
4.3. Conclusion
L’identification des populations de raies et la définition des frontières délimitant ces populations a
été pour nous un objectif prioritaire. L’application de la méthode de génétique moléculaire a permis
de résoudre un certain nombre de problèmes entre espèces très voisines.
Les deux marqueurs utilisés mettent en évidence l’incertitude qui règne dans la détermination de R.
brachyura, R. montagui et R. polystigma : ces espèces morphologiquement différentes mais
génétiquement proches semblent constituer un même groupe d’espèces sympatriques, jumelles.