

Chapitre II :
Matériels et méthodes
36
2.7.2. Mortalité naturelle « M »
Le coefficient de mortalité naturelle « M » exprime la mortalité due à toute cause autre que
la pêche et elle est liée à plusieurs facteurs, Pauly et Moreau (1997), divisent ces causes
en trois groupes :
les mortalités physiologique : causées uniquement par les maladies, le
vieillissement(ou les deux à la fois).
Les mortalités sélectives : provoquées par les même raisons que les précédentes et
affectant le poisson au point de contribuer à le rendre accessible aux prédateurs.
Les mortalités aléatoires : elles ne sont reliées à aucun mécanisme physiologique
mais qui sont proportionnelles au nombre de rencontre possibles avec des
prédateurs potentiels.
Plusieurs méthodes sont utilisées pour l’estimation de la mortalité naturelle « M », la
méthode de Pauly (1983), la méthode de Djabali et al. (1993), la méthode de Cubillos
(2003) et la méthode de Taylor (1959) ; mais la plupart d’entre elles ont été conçues pour
les stocks de poisson.
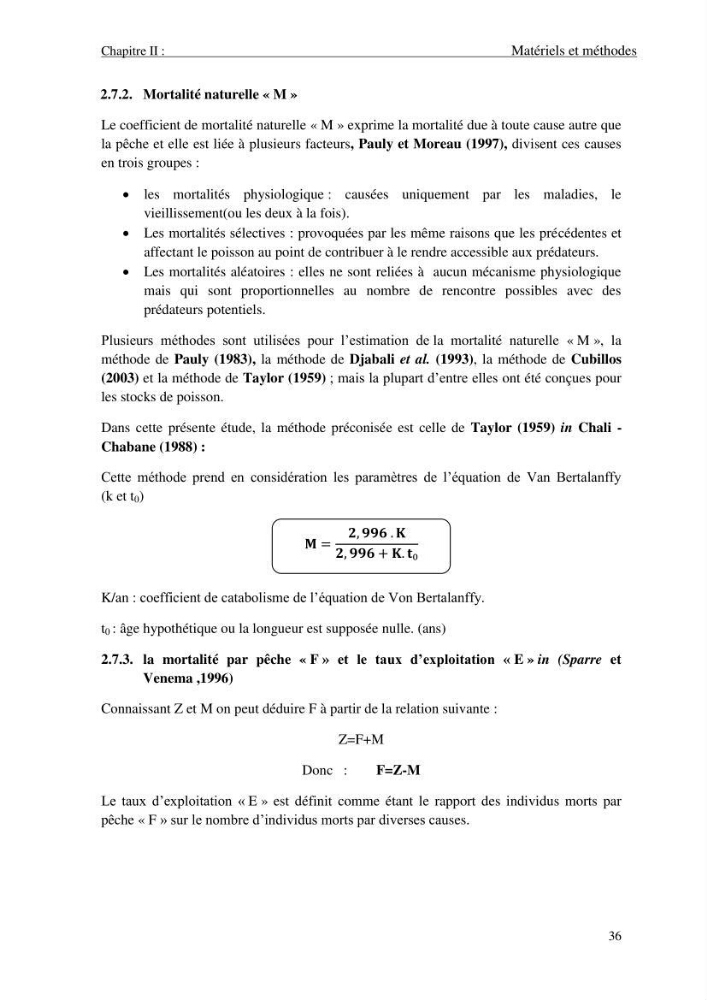
Dans cette présente étude, la méthode préconisée est celle de Taylor (1959) in Chali -
Chabane (1988) :
Cette méthode prend en considération les paramètres de l’équation de Van Bertalanffy
(k et t 0 )
K/an : coefficient de catabolisme de l’équation de Von Bertalanffy.
t 0 : âge hypothétique ou la longueur est supposée nulle. (ans)
2.7.3. la mortalité par pêche « F » et le taux d’exploitation « E » in (Sparre et
Venema ,1996)
Connaissant Z et M on peut déduire F à partir de la relation suivante :
Z=F+M
Donc :
F=Z-M
Le taux d’exploitation « E » est définit comme étant le rapport des individus morts par
pêche « F » sur le nombre d’individus morts par diverses causes.
₀