

…
'
€
548
NUTRITION CABBONÉE DE LA PLANTE
pendant la phase lumineuse ne peut être utilisée et il y a saturation des
accepteurs et des transporteurs de cet agent réducteur qui ne sont plus
déchargés totalement à chaque fois. Donc ces transporteurs ne sont
plus disponibles, lors de l’éclair suivant, pour se recharger. L’énergie
lumineuse en excès est perdue (g. 229 a).
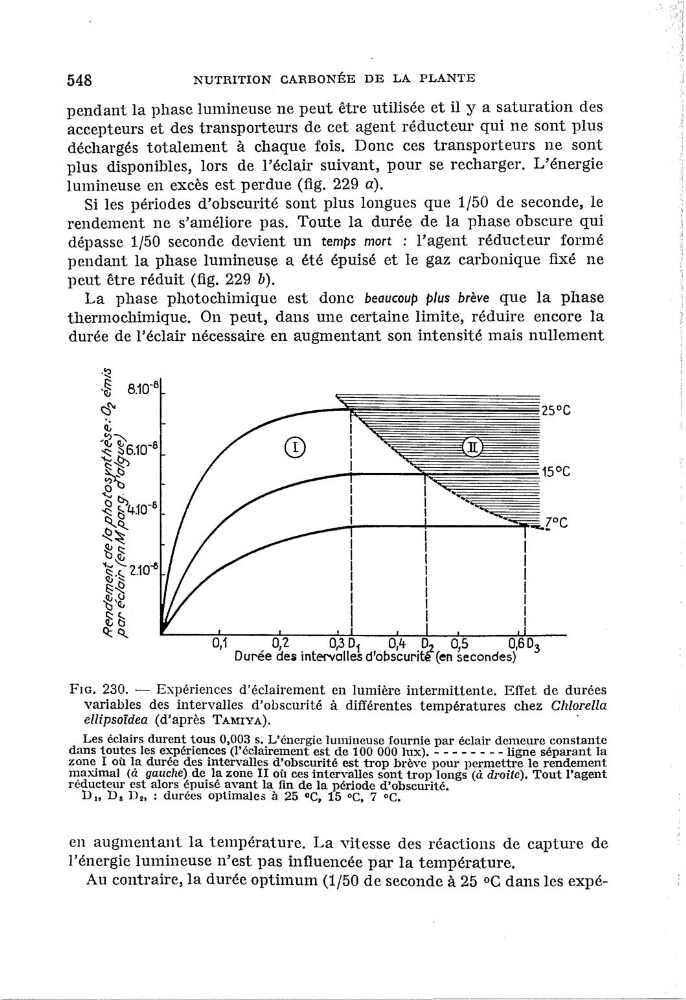
Si les périodes d’obscurité sont plus longues que 1/50 de seconde, le
rendement ne s’améliore pas. Toute la durée de la phase obscure qui
j }
dépasse 1/50 seconde devient un temps mort : l’agent réducteur formé
pendant la phase lumineuse a été épuisé et le gaz carbonique xé ne
peut être réduit (g. 229 b).
La phase photochimique est donc beaucoup plus brève que la phase
'
thermochimique. On peut, dans une certaine limite, réduire encore la
durée de l’éclair nécessaire en augmentant son intensité mais nullement
-e
«% 8.10‘5
5
9“‘
,
25°C
5
_8
:
ss°°
@
: Ë
15°C
Q
|
‘
'
*—,—=
0 23
—8
|
I
È
|
|
|
Qs
:
'
|
0.) Q
|
|
Be
'
|
|
2.10”°
}
l
|
Q: S
'
|
%s
:
|
‘
'
'
0,1
0,2
_
0,3 01
0,4 _0
0,5
0,503
,
Duree des mtervolles d'obscumtê(en secondes)
‘
PIG. 280. — Expériences d’éclairement en lumière intermittente. Effet de durées
variables des intervalles d’obscurité à différentes températures chez Chlorella
ellipsoîdea (d’après TAMIYA).
'
Les éclairs durent tous 0,003 5. L’énergie lumineuse fournie par éclair demeure constante
dans toutes les expériences (l’éclairement est de 100 000 lux). — - — - - — — - ligne séparant la
zone I où la durée des intervalles d’obscurité est trop brève pour permettre le rendement
,
mammal (a gauche) de_ la zone II où ces intervalles sont trop longs (à droite). Tout l’agent
redacteur est alors épuxsé avant la n de la période d’obscurité.
D], D;
:
durées optimales à 25 °C, 15 °C, 7 °C.
611 augmentant la température. La vitesse des réactions de capture de
l’énergie lumineuse n’est pas inuencée par la température.
Au contraire, la durée optimum (1 /50 de seconde à 25 °C dans les expé—
3 :
'
€
548
NUTRITION CABBONÉE DE LA PLANTE
pendant la phase lumineuse ne peut être utilisée et il y a saturation des
accepteurs et des transporteurs de cet agent réducteur qui ne sont plus
déchargés totalement à chaque fois. Donc ces transporteurs ne sont
plus disponibles, lors de l’éclair suivant, pour se recharger. L’énergie
lumineuse en excès est perdue (g. 229 a).
Si les périodes d’obscurité sont plus longues que 1/50 de seconde, le
rendement ne s’améliore pas. Toute la durée de la phase obscure qui
j }
dépasse 1/50 seconde devient un temps mort : l’agent réducteur formé
pendant la phase lumineuse a été épuisé et le gaz carbonique xé ne
peut être réduit (g. 229 b).
La phase photochimique est donc beaucoup plus brève que la phase
'
thermochimique. On peut, dans une certaine limite, réduire encore la
durée de l’éclair nécessaire en augmentant son intensité mais nullement
-e
«% 8.10‘5
5
9“‘
,
25°C
5
_8
:
ss°°
@
: Ë
15°C
Q
|
‘
'
*—,—=
0 23
—8
|
I
È
|
|
|
Qs
:
'
|
0.) Q
|
|
Be
'
|
|
2.10”°
}
l
|
Q: S
'
|
%s
:
|
‘
'
'
0,1
0,2
_
0,3 01
0,4 _0
0,5
0,503
,
Duree des mtervolles d'obscumtê(en secondes)
‘
PIG. 280. — Expériences d’éclairement en lumière intermittente. Effet de durées
variables des intervalles d’obscurité à différentes températures chez Chlorella
ellipsoîdea (d’après TAMIYA).
'
Les éclairs durent tous 0,003 5. L’énergie lumineuse fournie par éclair demeure constante
dans toutes les expériences (l’éclairement est de 100 000 lux). — - — - - — — - ligne séparant la
zone I où la durée des intervalles d’obscurité est trop brève pour permettre le rendement
,
mammal (a gauche) de_ la zone II où ces intervalles sont trop longs (à droite). Tout l’agent
redacteur est alors épuxsé avant la n de la période d’obscurité.
D], D;
:
durées optimales à 25 °C, 15 °C, 7 °C.
611 augmentant la température. La vitesse des réactions de capture de
l’énergie lumineuse n’est pas inuencée par la température.
Au contraire, la durée optimum (1 /50 de seconde à 25 °C dans les expé—
3 :