

chapitre 31 Les Eumycètes 743
La reproduction sexuée
Chez la plupart des espèces, les noyaux des hyphes et des
spores sont haploïdes. Toutefois, un grand nombre d’Eumycètes présentent des stades diploïdes transitoires au cours de
leur cycle de développement. La reproduction sexuée s’amorce
souvent lorsque des hyphes provenant de deux mycéliums
distincts libèrent des molécules sexuelles de signalisation
appelées phéromones. Si les mycéliums appartiennent à
des types sexuels différents, les phéromones de chacun des
partenaires se lient aux récepteurs de l’autre, et les hyphes
s’étendent vers la source des phéromones (voir la figure 11.2,
p. 234). Lorsqu’elles se rencontrent, les hyphes fusionnent.
Ce « test de compatibilité » contribue à la variabilité génétique
en empêchant la fusion des hyphes provenant d’un même
mycélium ou de deux mycéliums possédant le même génotype.
On appelle plasmogamie la fusion des cytoplasmes à la
suite de la rencontre des deux mycéliums parents. Chez la
plupart des espèces, les noyaux haploïdes issus de chacun des
parents ne fusionnent pas immédiatement. Des noyaux génétiquement différents coexistent plutôt dans certaines parties
des mycéliums fusionnés. Les mycéliums de ce type sont des
hétérocaryons (ce qui signifie « noyaux différents »). Chez
certaines espèces, les noyaux différents peuvent même échanger des chromosomes et des gènes au cours d’un processus
semblable à l’enjambement (voir le chapitre 13). Chez d’autres
espèces, les différents noyaux haploïdes provenant des parents
s’apparient sans toutefois fusionner. Le mycélium constitue
alors un dicaryon (ce qui signifie « deux noyaux »). Les paires
de noyaux se divisent en tandem sans fusionner, à mesure
que le mycélium dicaryote croît. Dans la mesure où ces cellules
contiennent deux noyaux haploïdes distincts, elles diffèrent
des cellules diploïdes, qui ont des paires de chromosomes
homologues contenus dans un seul noyau.
Chez certains Eumycètes, il peut s’écouler des heures, des
jours, voire des siècles, entre la plasmogamie et le stade suivant du cycle de développement sexué, la caryogamie. Au
cours de celle-ci, les noyaux haploïdes provenant de chacun
des parents fusionnent et donnent naissance à des cellules
diploïdes. Chez la majorité des Eumycètes, les zygotes et les
autres structures transitoires formées par caryogamie sont
les seules étapes diploïdes du cycle de développement. Par la
suite, la méiose restitue l’état haploïde, ce qui entraîne la formation et la dispersion de spores.
La caryogamie et la méiose engendrent une importante
variation génétique, sans quoi l’évolution adaptative n’aurait
pas lieu (voir les chapitres 13 et 23 pour une révision de la
diversité génétique issue de la reproduction sexuée au sein
d’une population). Le stade hétérocaryote offre aussi certains des avantages de l’état diploïde ; en effet, l’un des deux
génomes haploïdes peut neutraliser les mutations nuisibles
survenues chez l’autre.
La reproduction asexuée
De nombreux Eumycètes peuvent se reproduire de manière
tant sexuée qu’asexuée. Quelque 20 000 espèces se reproduisent exclusivement par voie asexuée. Comme ceux de la
reproduction sexuée, les processus de la reproduction asexuée
diffèrent grandement selon les espèces.
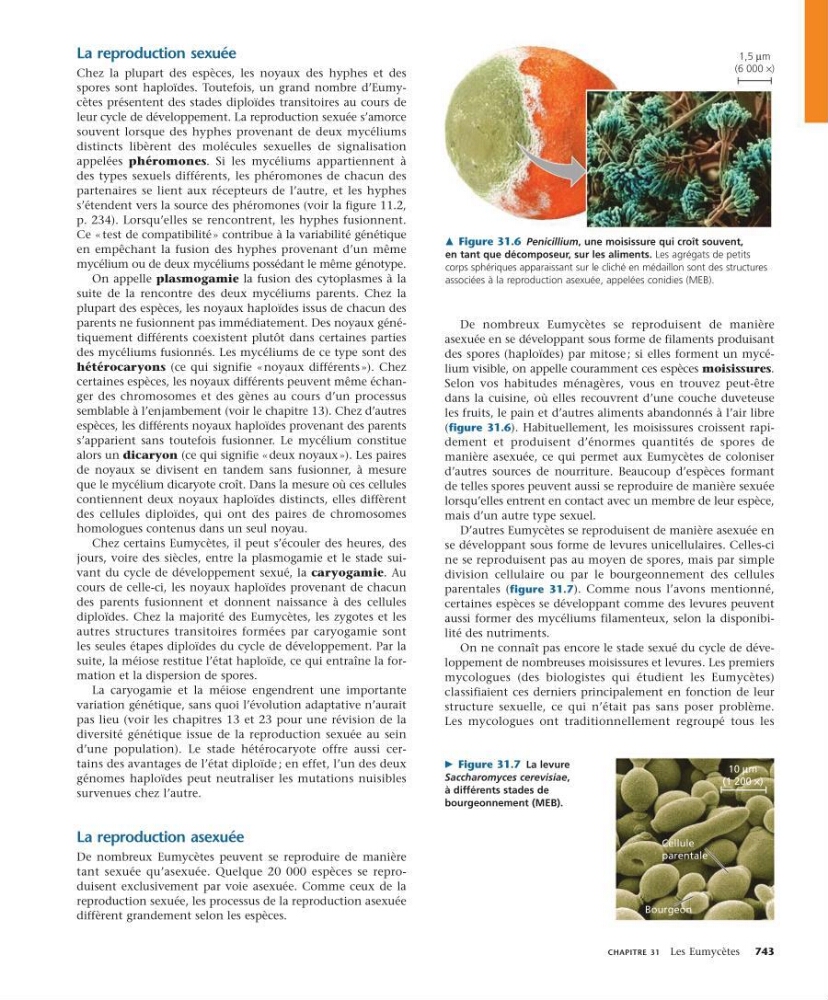
De nombreux Eumycètes se reproduisent de manière
asexuée en se développant sous forme de filaments produisant
des spores (haploïdes) par mitose ; si elles forment un mycélium visible, on appelle couramment ces espèces moisissures.
Selon vos habitudes ménagères, vous en trouvez peut-être
dans la cuisine, où elles recouvrent d’une couche duveteuse
les fruits, le pain et d’autres aliments abandonnés à l’air libre
(figure 31.6). Habituellement, les moisissures croissent rapidement et produisent d’énormes quantités de spores de
manière asexuée, ce qui permet aux Eumycètes de coloniser
d’autres sources de nourriture. Beaucoup d’espèces formant
de telles spores peuvent aussi se reproduire de manière sexuée
lorsqu’elles entrent en contact avec un membre de leur espèce,
mais d’un autre type sexuel.
D’autres Eumycètes se reproduisent de manière asexuée en
se développant sous forme de levures unicellulaires. Celles-ci
ne se reproduisent pas au moyen de spores, mais par simple
division cellulaire ou par le bourgeonnement des cellules
parentales (figure 31.7). Comme nous l’avons mentionné,
certaines espèces se développant comme des levures peuvent
aussi former des mycéliums filamenteux, selon la disponibilité des nutriments.
On ne connaît pas encore le stade sexué du cycle de développement de nombreuses moisissures et levures. Les premiers
mycologues (des biologistes qui étudient les Eumycètes)
classifiaient ces derniers principalement en fonction de leur
structure sexuelle, ce qui n’était pas sans poser problème.
Les mycologues ont traditionnellement regroupé tous les
m Figure 31.6 Penicillium, une moisissure qui croît souvent,
en tant que décomposeur, sur les aliments. Les agrégats de petits
corps sphériques apparaissant sur le cliché en médaillon sont des structures
associées à la reproduction asexuée, appelées conidies (MEB).
1,5 Rm
(6 000 w)
c Figure 31.7 La levure
Saccharomyces cerevisiae,
à différents stades de
bour geonnement (MEB).
Bourgeon
Cellule
parentale
10 Rm
(1 200 w)