

728 cinqUième partie La diversité biologique à travers l’évolution
(sac embryonnaire). L’un des noyaux de spermatozoïde s’unit
à l’oosphère pour donner un zygote diploïde. L’autre noyau
de spermatozoïde se lie aux deux noyaux haploïdes (appelés
noyaux polaires) de la grosse cellule centrale du gamétophyte
femelle, produisant une cellule triploïde. Ce phénomène,
caractéristique des Angio spermes, porte le nom de double
fécondation.
Après la double fécondation, l’ovule se transforme en graine.
Le zygote, lui, devient un embryon de sporophyte portant
une racine rudimentaire et une ou deux feuilles embryonnaires, les cotylédons. La cellule triploïde centrale du gamétophyte femelle forme l’albumen, un tissu riche en amidon
et en d’autres réserves nutritives qui nourrissent l’embryon.
(Rappelezvous que chez les Gymno spermes, c’est le tissu
haploïde du gamétophyte femelle luimême, l’endosperme,
qui sert de nourriture à l’embryon.)
Quelle est la fonction de la double fécondation ? Certains
experts pensent qu’elle synchronise la constitution, dans la
graine, de la réserve nutritive avec le développement de l’embryon. Si une fleur n’est pas pollinisée ou si les spermatozoïdes
ne sont pas libérés dans les sacs embryonnaires, la fécondation
n’a pas lieu. Par conséquent, l’embryon et l’albumen ne se
forment pas. La double fécondation constitue peutêtre une
adaptation qui évite aux plantes à fleurs de consacrer de précieux nutriments à des ovules infertiles.
Certaines espèces de Gymno spermes appartenant à l’embranchement des Gnétophytes présentent un autre type de
double fécondation. Toutefois, chez ces espèces, le processus
donne naissance à deux embryons plutôt qu’à un embryon et
à un albumen.
Comme nous l’avons mentionné plus tôt, la graine est
composée de l’embryon, de l’albumen et d’un tégument
issu des couches externes de l’ovule. Au fur et à mesure que
les ovules se transforment en graines,
l’ovaire devient un fruit. Après avoir
été dispersées par le vent ou par des
animaux, les graines germent si elles
trouvent un environnement favorable.
Leur enveloppe se brise ; l’embryon
émerge, puis se transforme en un jeune
plant qui consomme les réserves entreposées dans l’albumen et dans les cotylédons jusqu’à ce qu’il soit capable de
photosynthèse.
L’évolution des angio spermes
La clarification de l’origine des Angiospermes, ce que Charles Darwin a un
jour qualifié d’affreux mystère, représente pour les biologistes de l’évolution
un défi fascinant. Les Angio spermes sont
apparues il y a au moins 140 millions
d’années, et les principaux embranchements du clade ont divergé de leur
ancêtre commun au cours de la dernière partie du Mésozoïque. Vers la
moitié du Crétacé (il y a 100 millions
d’années), les Angio spermes ont commencé à domi ner de nombreux écosystèmes terrestres. Les paysages ont énormément changé quand
les Pinophytes, les Cycadophytes et d’autres Gymno spermes
ont cédé la place à des plantes à fleurs dans de nombreuses
parties du monde.
Les Angio spermes se distinguent remarquablement des
Gymno spermes modernes par leurs fleurs et leurs fruits, ce qui
complique la détermination des origines des Angio spermes.
Pour comprendre comment est apparu leur plan d’organisation, les scientifiques étudient des fossiles afin de préciser la
phylogenèse des Angio spermes. Ils étudient les gènes de développement associés à l’apparition des fleurs et d’autres innovations de ce groupe de végétaux. Comme nous le verrons, la
résolution du mystère de Darwin va bon train, mais notre
compréhension des liens évolutifs entre les Angio spermes et
les premières Vasculaires à graines est encore imparfaite.
Les fossiles d’Angio spermes
À la fin des années 1990, des scientifiques ont découvert en
Chine plusieurs surprenants fossiles d’Angio spermes vieux de
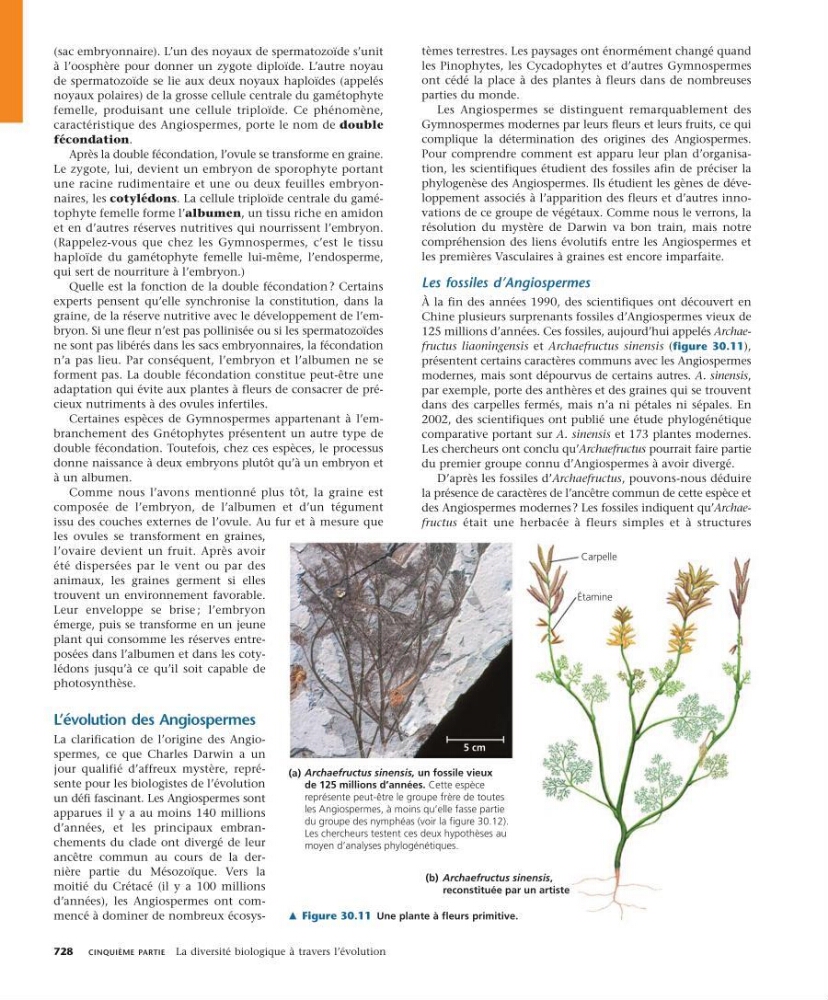
125 millions d’années. Ces fossiles, aujourd’hui appelés Archaefructus liaoningensis et Archaefructus sinensis (figure 30.11),
présentent certains caractères communs avec les Angio spermes
modernes, mais sont dépourvus de certains autres. A. sinensis,
par exemple, porte des anthères et des graines qui se trouvent
dans des carpelles fermés, mais n’a ni pétales ni sépales. En
2002, des scientifiques ont publié une étude phylogénétique
comparative portant sur A. sinensis et 173 plantes modernes.
Les chercheurs ont conclu qu’Archaefructus pourrait faire partie
du premier groupe connu d’Angio spermes à avoir divergé.
D’après les fossiles d’Archaefructus, pouvonsnous déduire
la présence de caractères de l’ancêtre commun de cette espèce et
des Angio spermes modernes ? Les fossiles indiquent qu’Archaefructus était une herbacée à fleurs simples et à structures
m Figure 30.11 Une plante à fleurs primitive.
5 cm
(a)
(b) Archaefructus sinensis,
reconstituée par un artiste
Carpelle
Étamine
Archaefructus sinensis, un fossile vieux
de 125 millions d’années. Cette espèce
représente peut-être le groupe frère de toutes
les Angiospermes, à moins qu’elle fasse partie
du groupe des nymphéas (voir la figure 30.12).
Les chercheurs testent ces deux hypothèses au
moyen d’analyses phylogénétiques.