

634 cinquième partie La diversité biologique à travers l’évolution
Les horloges moléculaires
Nous l’avons vu précédemment, l’ancêtre commun des Argyroxiphium a probablement vécu il y a cinq millions d’années.
Comment les chercheurs sont-ils arrivés à cette estimation ?
Ils se sont appuyés sur le concept d’horloge moléculaire
dont les bases furent jetées, en 1965, par Emil Zuckerkandl
et Linus Pauling. Ils élaborèrent cette idée après avoir déterminé les séquences d’acides aminés des molécules d’hémoglobine de plusieurs espèces de Vertébrés et comparé l’information
avec les dates estimées d’apparition de chacune des espèces
étudiées. L’horloge moléculaire est une échelle de référence
qui sert à mesurer le temps absolu des changements évolutifs
à partir de l’observation voulant que certaines régions du
génome, dont les gènes, aient évolué à des vitesses constantes.
Selon l’hypothèse qui sous-tend le concept d’horloge moléculaire, le nombre de substitutions de nucléotides dans les
gènes orthologues et d’acides aminés désignés par ces gènes
est proportionnel au temps écoulé depuis la ramification des
lignées à partir de leur ancêtre commun (le temps de divergence). Dans le cas des gènes paralogues, le nombre de substitutions est proportionnel au temps écoulé depuis la dupli cation
du gène ancestral.
Dans le cas d’un gène dont la vitesse moyenne d’évolution
est fiable, il est possible d’étalonner l’horloge moléculaire en
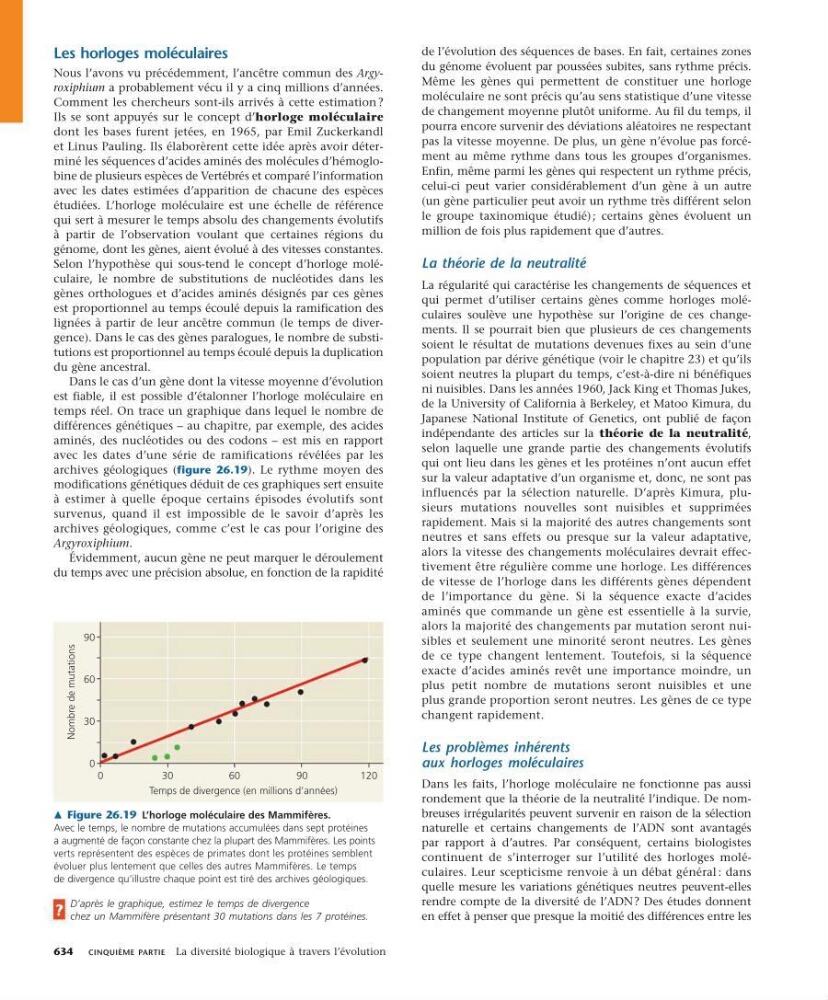
temps réel. On trace un graphique dans lequel le nombre de
différences génétiques – au chapitre, par exemple, des acides
aminés, des nucléotides ou des codons – est mis en rapport
avec les dates d’une série de ramifications révélées par les
archives géologiques (figure 26.19). Le rythme moyen des
modifications génétiques déduit de ces graphiques sert ensuite
à estimer à quelle époque certains épisodes évolutifs sont
survenus, quand il est impossible de le savoir d’après les
archives géologiques, comme c’est le cas pour l’origine des
Argyroxiphium.
Évidemment, aucun gène ne peut marquer le déroulement
du temps avec une précision absolue, en fonction de la rapidité
de l’évolution des séquences de bases. En fait, certaines zones
du génome évoluent par poussées subites, sans rythme précis.
Même les gènes qui permettent de constituer une horloge
moléculaire ne sont précis qu’au sens statistique d’une vitesse
de changement moyenne plutôt uniforme. Au fil du temps, il
pourra encore survenir des déviations aléatoires ne respectant
pas la vitesse moyenne. De plus, un gène n’évolue pas forcément au même rythme dans tous les groupes d’organismes.
Enfin, même parmi les gènes qui respectent un rythme précis,
celui-ci peut varier considérablement d’un gène à un autre
(un gène particulier peut avoir un rythme très différent selon
le groupe taxinomique étudié) ; certains gènes évoluent un
million de fois plus rapidement que d’autres.
La théorie de la neutralité
La régularité qui caractérise les changements de séquences et
qui permet d’utiliser certains gènes comme horloges moléculaires soulève une hypothèse sur l’origine de ces changements. Il se pourrait bien que plusieurs de ces changements
soient le résultat de mutations devenues fixes au sein d’une
population par dérive génétique (voir le chapitre 23) et qu’ils
soient neutres la plupart du temps, c’est-à-dire ni bénéfiques
ni nuisibles. Dans les années 1960, Jack King et Thomas Jukes,
de la University of California à Berkeley, et Matoo Kimura, du
Japanese National Institute of Genetics, ont publié de façon
indépendante des articles sur la théorie de la neutralité,
selon laquelle une grande partie des changements évolutifs
qui ont lieu dans les gènes et les protéines n’ont aucun effet
sur la valeur adaptative d’un organisme et, donc, ne sont pas
influencés par la sélection naturelle. D’après Kimura, plusieurs mutations nouvelles sont nuisibles et supprimées
rapidement. Mais si la majorité des autres changements sont
neutres et sans effets ou presque sur la valeur adaptative,
alors la vitesse des changements moléculaires devrait effectivement être régulière comme une horloge. Les différences
de vitesse de l’horloge dans les différents gènes dépendent
de l’importance du gène. Si la séquence exacte d’acides
aminés que commande un gène est essentielle à la survie,
alors la majorité des changements par mutation seront nuisibles et seulement une minorité seront neutres. Les gènes
de ce type changent lentement. Toutefois, si la séquence
exacte d’acides aminés revêt une importance moindre, un
plus petit nombre de mutations seront nuisibles et une
plus grande proportion seront neutres. Les gènes de ce type
changent rapidement.
Les problèmes inhérents
aux horloges moléculaires
Dans les faits, l’horloge moléculaire ne fonctionne pas aussi
rondement que la théorie de la neutralité l’indique. De nombreuses irrégularités peuvent survenir en raison de la sélection
naturelle et certains changements de l’ADN sont avantagés
par rapport à d’autres. Par conséquent, certains biologistes
continuent de s’interroger sur l’utilité des horloges moléculaires. Leur scepticisme renvoie à un débat général : dans
quelle mesure les variations génétiques neutres peuvent-elles
rendre compte de la diversité de l’ADN ? Des études donnent
en effet à penser que presque la moitié des différences entre les
m Figure 26.19 L’horloge moléculaire des Mammifères.
Avec le temps, le nombre de mutations accumulées dans sept protéines
a augmenté de façon constante chez la plupart des Mammifères. Les points
verts représentent des espèces de primates dont les protéines semblent
évoluer plus lentement que celles des autres Mammifères. Le temps
de divergence qu’illustre chaque point est tiré des archives géologiques.
D’après le graphique, estimez le temps de divergence
chez un Mammifère présentant 30 mutations dans les 7 protéines.
?
Nombre de mutations
Temps de divergence (en millions d’années)
0
30
60
90
120
90
60
30
0