

608 quatrième partie Les mécanismes de l’évolution
Les changements d’ordre spatial
Les changements évolutifs substantiels peuvent aussi résulter
de modifications dans les gènes qui régissent l’emplacement
et l’organisation spatiale des diverses parties du corps. Par
exemple, comme nous l’avons vu aux chapitres 18 et 21, les
gènes homéotiques déterminent les caractéristiques fondamentales de l’emplacement d’une paire d’ailes et d’une paire
de pattes sur le corps d’un oiseau, ou encore la disposition
des parties florales d’une plante.
Les produits d’une catégorie particulière de gènes homéotiques (les gènes Hox) fournissent des renseignements sur la
position des cellules de l’embryon animal. Cette information
pousse les cellules à se développer de façon à former les structures convenant à un endroit particulier du corps. Les changements qui touchent les gènes Hox ou la façon dont ils
s’expriment peuvent avoir des répercussions morphologiques
importantes. Ainsi, chez les Crustacés, il y a une corrélation
entre la transformation d’un appendice natatoire en un
appendice d’alimentation et la région du corps dans laquelle
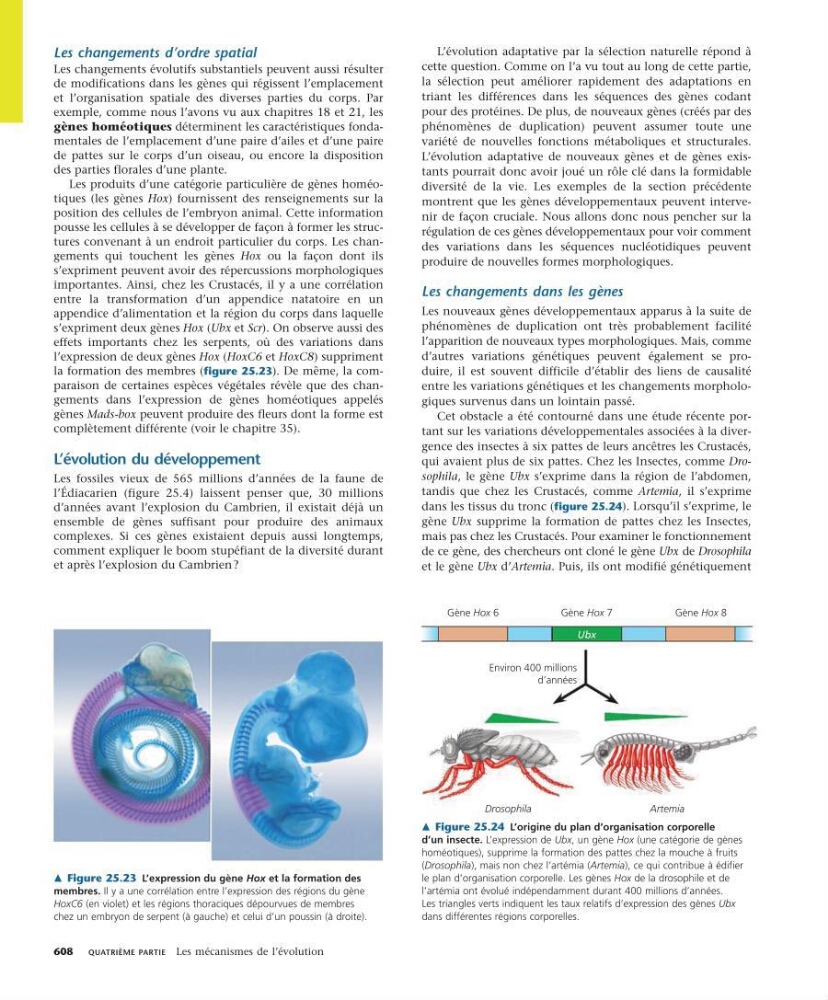
s’expriment deux gènes Hox (Ubx et Scr). On observe aussi des
effets importants chez les serpents, où des variations dans
l’expression de deux gènes Hox (HoxC6 et HoxC8) suppriment
la formation des membres (figure 25.23). De même, la comparaison de certaines espèces végétales révèle que des changements dans l’expression de gènes homéotiques appelés
gènes Mads-box peuvent produire des fleurs dont la forme est
complètement différente (voir le chapitre 35).
L’évolution du développement
Les fossiles vieux de 565 millions d’années de la faune de
l’Édiacarien (figure 25.4) laissent penser que, 30 millions
d’années avant l’explosion du Cambrien, il existait déjà un
ensemble de gènes suffisant pour produire des animaux
complexes. Si ces gènes existaient depuis aussi longtemps,
comment expliquer le boom stupéfiant de la diversité durant
et après l’explosion du Cambrien ?
L’évolution adaptative par la sélection naturelle répond à
cette question. Comme on l’a vu tout au long de cette partie,
la sélection peut améliorer rapidement des adaptations en
triant les différences dans les séquences des gènes codant
pour des protéines. De plus, de nouveaux gènes (créés par des
phénomènes de duplication) peuvent assumer toute une
variété de nouvelles fonctions métaboliques et structurales.
L’évolution adaptative de nouveaux gènes et de gènes existants pourrait donc avoir joué un rôle clé dans la formidable
diversité de la vie. Les exemples de la section précédente
montrent que les gènes développementaux peuvent intervenir de façon cruciale. Nous allons donc nous pencher sur la
régulation de ces gènes développementaux pour voir comment
des variations dans les séquences nucléotidiques peuvent
produire de nouvelles formes morphologiques.
Les changements dans les gènes
Les nouveaux gènes développementaux apparus à la suite de
phénomènes de duplication ont très probablement facilité
l’apparition de nouveaux types morphologiques. Mais, comme
d’autres variations génétiques peuvent également se produire, il est souvent difficile d’établir des liens de causalité
entre les variations génétiques et les changements morphologiques survenus dans un lointain passé.
Cet obstacle a été contourné dans une étude récente portant sur les variations développementales associées à la divergence des insectes à six pattes de leurs ancêtres les Crustacés,
qui avaient plus de six pattes. Chez les Insectes, comme Drosophila, le gène Ubx s’exprime dans la région de l’abdomen,
tandis que chez les Crustacés, comme Artemia, il s’exprime
dans les tissus du tronc (figure 25.24). Lorsqu’il s’exprime, le
gène Ubx supprime la formation de pattes chez les Insectes,
mais pas chez les Crustacés. Pour examiner le fonctionnement
de ce gène, des chercheurs ont cloné le gène Ubx de Droso phila
et le gène Ubx d’Artemia. Puis, ils ont modifié génétiquement
m Figure 25.23 L’expression du gène Hox et la formation des
membres. Il y a une corrélation entre l’expression des régions du gène
HoxC6 (en violet) et les régions thoraciques dépourvues de membres
chez un embryon de serpent (à gauche) et celui d’un poussin (à droite).
Environ 400 millions
d’années
Gène Hox 6
Drosophila
Artemia
Gène Hox 7
Ubx
Gène Hox 8
m Figure 25.24 L’origine du plan d’organisation corporelle
d’un insecte. L’expression de Ubx, un gène Hox (une catégorie de gènes
homéotiques), supprime la formation des pattes chez la mouche à fruits
(Drosophila), mais non chez l’artémia (Artemia), ce qui contribue à édifier
le plan d’organisation corporelle. Les gènes Hox de la drosophile et de
l’artémia ont évolué indépendamment durant 400 millions d’années.
Les triangles verts indiquent les taux relatifs d’expression des gènes Ubx
dans différentes régions corporelles.