

chapitre 24 L’origine des espèces
581
Que nous apprennent de telles données ? Premièrement,
en moyenne, il peut s’écouler des millions d’années avant
qu’une espèce nouvellement formée donne elle-même naissance à une nouvelle espèce. Comme nous le verrons au chapitre 25, cette constatation n’est pas sans conséquence au
regard du temps qu’il a fallu à la Terre pour se remettre des
épisodes d’extinctions massives. Deuxièmement, l’extrême
variabilité du temps nécessaire pour que se forme une nouvelle espèce nous indique qu’il n’y a pas d’« horloge interne
de spéciation » qui pousserait les organismes à produire une
nouvelle espèce à intervalles réguliers. En fait, la spéciation
ne s’amorce qu’après l’interruption du flux génétique entre
des populations, vraisemblablement sous l’effet d’un changement des conditions environnementales ou par un phénomène imprévisible – un cataclysme, par exemple –, qui
transporte quelques individus vers une zone isolée. De plus,
une fois le flux génétique interrompu, les populations doivent
diverger génétiquement jusqu’à l’isolement reproductif, et ce,
avant que d’autres phénomènes rétablissent le flux génétique
et renversent le processus de spéciation en cours (voir la
figure 24.16).
Étudier la génétique de la spéciation
Les études qui portent sur des spéciations en cours (comme
dans les zones hybrides) peuvent révéler les caractères génétiques dont provient l’isolement reproductif. En repérant les
gènes qui régissent ces caractères, les scientifiques peuvent
approfondir une des questions fondamentales de la biologie
de l’évolution : combien de gènes doivent-ils changer pour
que se forme une nouvelle espèce ?
Dans de rares cas, l’évolution de l’isolement reproductif
s’explique par l’apparition d’un changement dans un seul et
unique gène. Ainsi, chez les escargots japonais du genre Euhadra, la modification d’un seul gène, celui qui régit le sens de
l’enroulement de la coquille, peut produire une barrière reproductive mécanique. En effet, les organes génitaux des escargots
sont orientés latéralement, de telle manière que l’accouplement est impossible si leurs coquilles respectives ne s’enroulent
pas dans le même sens (la figure 24.3f en montre un exemple).
La barrière reproductive majeure qui existe entre deux
espèces de mimules étroitement reliées, Mimulus cardinalis et
Mimulus lewisii (des plantes herbacées vivaces), semble aussi
dépendre d’un nombre relativement réduit de gènes. Ces
deux espèces sont isolées par plusieurs barrières reproductives
prézygotiques et postzygotiques. Toutefois, l’une de ces barrières prézygo tiques, le choix du pollinisateur, est responsable
de la majeure partie de cet isolement : dans une zone hybride
entre M. cardinalis et M. lewisii, on a constaté que près de 98 %
des visites de pollinisateurs étaient réservées à une espèce ou
à l’autre.
Les deux espèces de mimules sont visitées par divers pollinisateurs : les colibris préfèrent le M. cardinalis à fleurs rouges
tandis que les bourdons butinent plutôt le M. lewisii à fleurs
roses. Douglas Schemske de la Michigan State University et
ses collègues ont démontré que chez les mimules le choix du
pollinisateur est déterminé par au moins deux loci, dont l’un,
le locus yellow upper ou yup, influe sur la couleur des fleurs
(figure 24.20). En croisant les deux espèces parentales pour
produire des hybrides F 1 puis en croisant à répétition ces
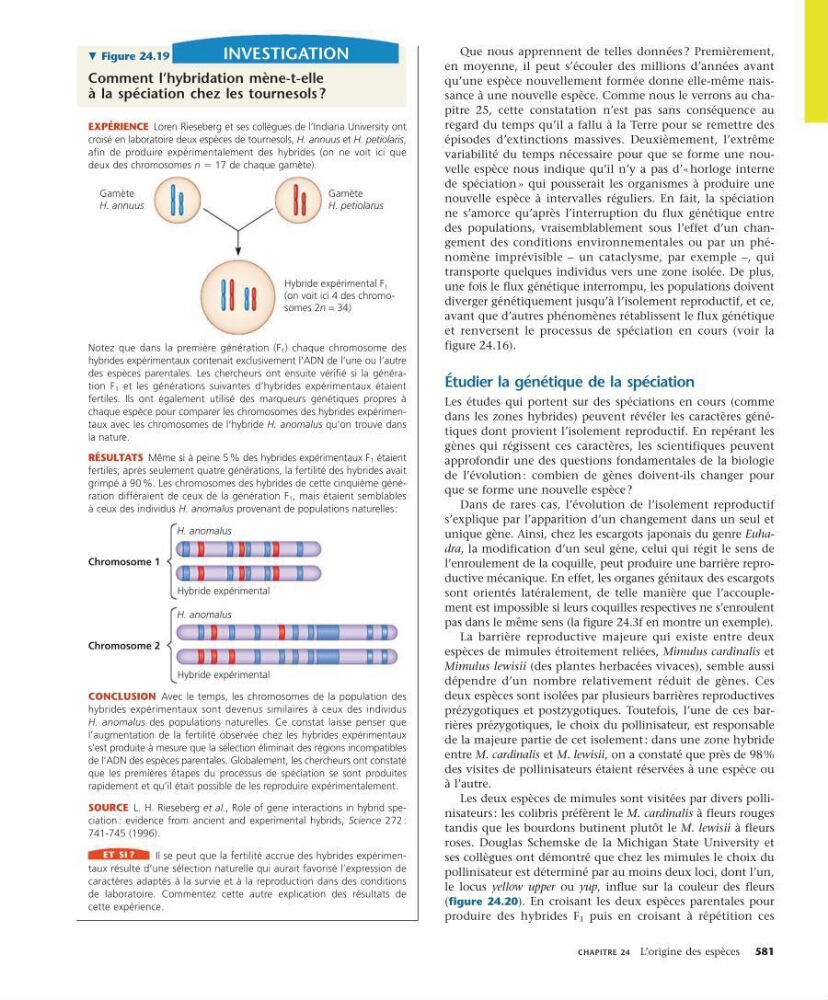
. Figure 24.19
comment l’hybridation mène-t-elle
à la spéciation chez les tournesols ?
eXpérienCe Loren Rieseberg et ses collègues de l’Indiana University ont
croisé en laboratoire deux espèces de tournesols, H. annuus et H. petiolaris,
afin de produire expérimentalement des hybrides (on ne voit ici que
deux des chromosomes n 5 17 de chaque gamète).
Gamète
H. annuus
Gamète
H. petiolarus
Hybride expérimental F 1
(on voit ici 4 des chromosomes 2n " 34)
Notez que dans la première génération (F 1 ) chaque chromosome des
hybrides expérimentaux contenait exclusivement l’ADN de l’une ou l’autre
des espèces parentales. Les chercheurs ont ensuite vérifié si la génération F 1 et les générations suivantes d’hybrides expérimentaux étaient
fertiles. Ils ont également utilisé des marqueurs génétiques propres à
chaque espèce pour comparer les chromosomes des hybrides expérimentaux avec les chromosomes de l’hybride H. anomalus qu’on trouve dans
la nature.
résultAts Même si à peine 5 % des hybrides expérimentaux F 1 étaient
fertiles, après seulement quatre générations, la fertilité des hybrides avait
grimpé à 90 %. Les chromosomes des hybrides de cette cinquième génération différaient de ceux de la génération F 1 , mais étaient semblables
à ceux des individus H. anomalus provenant de populations naturelles :
Hybride expérimental
Hybride expérimental
H. anomalus
H. anomalus
Chromosome 2
Chromosome 1
ConClusion Avec le temps, les chromosomes de la population des
hybrides expérimentaux sont devenus similaires à ceux des individus
H. anomalus des populations naturelles. Ce constat laisse penser que
l’augmentation de la fertilité observée chez les hybrides expérimentaux
s’est produite à mesure que la sélection éliminait des régions incompatibles
de l’ADN des espèces parentales. Globalement, les chercheurs ont constaté
que les premières étapes du processus de spéciation se sont produites
rapidement et qu’il était possible de les reproduire expérimentalement.
sourCe L. H. Rieseberg et al., Role of gene interactions in hybrid speciation : evidence from ancient and experimental hybrids, Science 272 :
741-745 (1996).
et si ?
Il se peut que la fertilité accrue des hybrides expérimentaux résulte d’une sélection naturelle qui aurait favorisé l’expression de
caractères adaptés à la survie et à la reproduction dans des conditions
de laboratoire. Commentez cette autre explication des résultats de
cette expérience.
investigation