

574 quatrième partie Les mécanismes de l’évolution
erreurs méiotiques et mitotiques (la colchicine, par exemple,
empêche la séparation des chromosomes durant la division
cellulaire). En se servant du processus de l’évolution, des
chercheurs peuvent produire de nouveaux hybrides dotés des
qualités désirées, comme un hybride pouvant combiner le
rendement supérieur du blé et la résistance aux maladies du
seigle (Secale cereale).
La différenciation de l’habitat
La spéciation sympatrique peut aussi se produire lorsque des
facteurs génétiques permettent à une sous-population d’exploiter un habitat ou une ressource que la population mère n’utilise pas. Tel est le cas de la larve de la mouche de la pomme
(Rhagoletis pomonella). À l’origine, les aubépines (Crataegus)
indigènes constituaient l’hôte de ces larves, mais, il y a environ 200 ans, certaines populations ont commencé à se développer sur des pommiers introduits par des colons européens.
Comme la pomme parvient à maturité plus rapidement que
le fruit de l’aubépine, la sélection a favorisé les larves se développant rapidement parmi celles qui se nourrissent de pommes.
Aujourd’hui, les populations qui se nourrissent de pommes
sont isolées temporellement des populations de R. pomonella,
ce qui constitue une barrière prézygotique au flux génétique
entre les deux populations. Les chercheurs ont également
trouvé des allèles qui avantagent les mouches qui utilisent
l’une des plantes hôtes, mais nuit aux mouches qui utilisent
l’autre plante hôte. Résultat : la sélection naturelle qui agit
sur ces allèles dresse une barrière reproductive postzygotique
qui limite encore le flux génétique. Bien que ces deux populations soient encore classées comme des sous-espèces (ou
des races) plutôt que comme des espèces distinctes, la spéciation semble suivre son cours.
La sélection sexuelle
Des données indiquent que la spéciation sympatrique peut
aussi se réaliser par le biais de la sélection sexuelle. Des chercheurs ont en effet trouvé des indices sur la façon dont ce
processus peut se produire chez les poissons Cichlidés du lac
Victoria, en Afrique de l’Est, l’un des hauts lieux de la spéciation animale. Ce plan d’eau a déjà hébergé plus de 600 espèces
de Cichlidés. Des données génétiques indiquent que ces espèces
sont apparues au cours des 100 000 dernières années et qu’elles
sont issues d’un petit nombre d’espèces colonisatrices venues
d’ailleurs. Comment de si nombreuses espèces – plus que le
double du nombre d’espèces de poissons qu’on trouve dans
les eaux douces de toute l’Europe – ont-elles pu naître dans
un seul lac ?
L’une des hypothèses veut que des sous-groupes des populations initiales de Cichlidés se soient adaptés à des ressources
alimentaires différentes, et que la divergence génétique qui
en a résulté ait contribué à la spéciation dans le lac Victoria.
Mais la sélection sexuelle – processus où, typiquement, les
femelles choisissent les mâles selon leur apparence (voir le
chapitre 23) – pourrait bien constituer un facteur important.
C’est du moins ce que laissent croire les travaux entrepris par
des chercheurs qui ont étudié deux espèces sympatriques
apparentées de Cichlidés dont la principale différence est la
coloration du dos des reproducteurs mâles. Il est bleu chez
l’espèce Pundamilia pundamilia et rouge chez l’espèce Pundamilia nyererei (figure 24.12). Les résultats donnent à penser
que le choix des partenaires selon leur couleur est le principal
mécanisme d’isolement reproductif qui empêche normalement les patrimoines génétiques des deux espèces de Cichlidés de fusionner.
La spéciation allopatrique
et la spéciation sympatrique : un résumé
Avant de poursuivre, résumons les deux principaux modes de
spéciation qui participent à l’apparition de nouvelles espèces.
L’isolement géographique limite fortement le flux génétique.
Conséquemment, d’autres barrières reproductives peuvent se
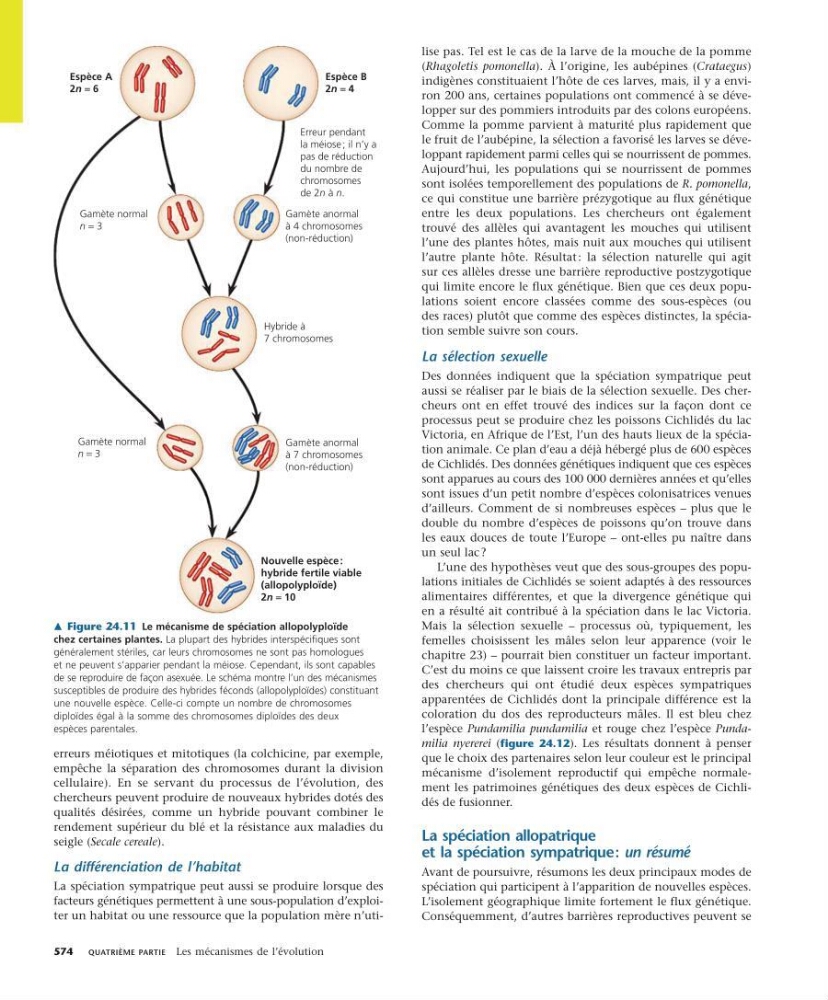
m Figure 24.11 Le mécanisme de spéciation allopolyploïde
chez certaines plantes. La plupart des hybrides interspécifiques sont
généralement stériles, car leurs chromosomes ne sont pas homologues
et ne peuvent s’apparier pendant la méiose. Cependant, ils sont capables
de se reproduire de façon asexuée. Le schéma montre l’un des mécanismes
susceptibles de produire des hybrides féconds (allopolyploïdes) constituant
une nouvelle espèce. Celle-ci compte un nombre de chromosomes
diploïdes égal à la somme des chromosomes diploïdes des deux
espèces parentales.
Erreur pendant
la méiose ; il n’y a
pas de réduction
du nombre de
chromosomes
de 2n à n.
Gamète normal
n " 3
Gamète anormal
à 4 chromosomes
(non-réduction)
Hybride à
7 chromosomes
Espèce A
2n = 6
Espèce B
2n = 4
Gamète anormal
à 7 chromosomes
(non-réduction)
Gamète normal
n " 3
Nouvelle espèce :
hybride fertile viable
(allopolyploïde)
2n = 10