

398 trOiSiÈMe partie La génétique
Les catégories de mutations à petite échelle
Voyons maintenant de quelle façon les mutations à petite
échelle modifient les protéines. On peut classer les mutations ponctuelles survenant à l’intérieur d’un gène en deux
grandes catégories : (1) les substitutions d’une seule paire
de nucléotides ; (2) les insertions ou les délétions de paires
de nucléotides. Les insertions et les délétions peuvent faire
intervenir une ou plusieurs paires de nucléotides.
Les substitutions
La substitution d’une paire de bases est le remplacement d’un nucléotide et de son vis-à-vis par une paire de
nucléotides différente (figure 17.24a). Certaines substitutions n’ont aucun effet sur la protéine synthétisée à cause de
la redondance du code génétique. Par exemple, si 39-CCG-59
sur le brin matrice devient 39-CCA-59 à la suite d’une mutation, le codon d’ARNm GGC devient GGU ; or, ces deux derniers commandent l’ajout d’une glycine à l’endroit voulu de
la protéine (voir la figure 17.5). Autrement dit, la modification d’une paire de nucléotides peut résulter en un codon
dont la traduction donne le même acide aminé que celui
pour lequel le codon initial aurait codé. Une telle modification est un exemple de mutation silencieuse, qui n’a
aucun effet observable sur le phénotype. (Les mutations
silencieuses peuvent se produire également à l’extérieur du
gène.) Les substitutions qui aboutissent au remplacement
d’un acide aminé par un autre sont appelées mutations
faux-sens. Il arrive qu’elles n’aient pas d’effets notables sur
la protéine synthétisée, parce que le nouvel acide aminé a des
propriétés semblables à celles de l’ancien ou encore parce que
la séquence exacte des acides aminés d’une certaine région de
la protéine n’est pas essentielle aux fonctions de celle-ci.
Bien plus intéressantes pour les généticiens sont les substitutions de paires de nucléotides qui occasionnent un changement important dans la composition de la protéine.
L’altération d’un seul acide aminé dans une région essentielle
de la protéine a des répercussions importantes sur l’activité de cette dernière
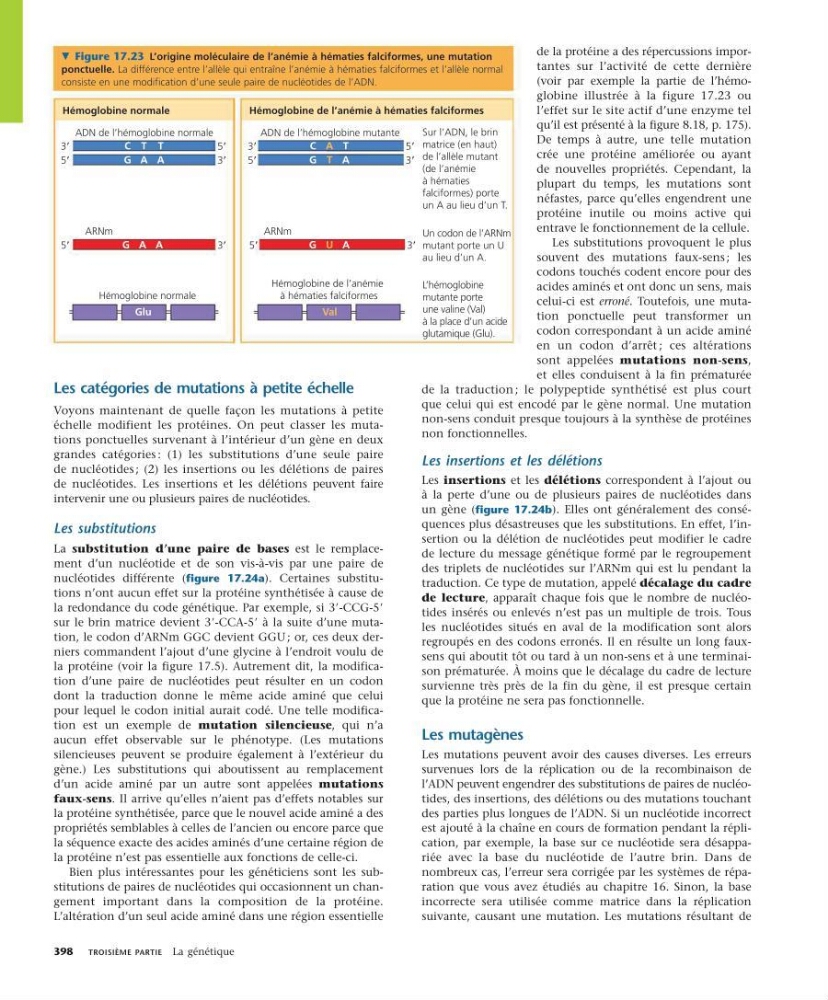
(voir par exemple la partie de l’hémoglobine illustrée à la figure 17.23 ou
l’effet sur le site actif d’une enzyme tel
qu’il est présenté à la figure 8.18, p. 175).
De temps à autre, une telle mutation
crée une protéine améliorée ou ayant
de nouvelles propriétés. Cependant, la
plu part du temps, les mutations sont
néfastes, parce qu’elles engendrent une
protéine inutile ou moins active qui
entrave le fonctionnement de la cellule.
Les substitutions provoquent le plus
souvent des mutations faux-sens ; les
codons touchés codent encore pour des
acides aminés et ont donc un sens, mais
celui-ci est erroné. Toutefois, une mutation ponctuelle peut transformer un
codon correspondant à un acide aminé
en un codon d’arrêt ; ces altérations
sont appelées mutations non-sens,
et elles conduisent à la fin prématurée
de la traduction ; le polypeptide synthétisé est plus court
que celui qui est encodé par le gène normal. Une mutation
non-sens conduit presque toujours à la synthèse de protéines
non fonctionnelles.
Les insertions et les délétions
Les insertions et les délétions correspondent à l’ajout ou
à la perte d’une ou de plusieurs paires de nucléotides dans
un gène (figure 17.24b). Elles ont généralement des conséquences plus désastreuses que les substitutions. En effet, l’insertion ou la délétion de nucléotides peut modifier le cadre
de lecture du message génétique formé par le regroupement
des triplets de nucléotides sur l’ARNm qui est lu pendant la
traduction. Ce type de mutation, appelé décalage du cadre
de lecture, apparaît chaque fois que le nombre de nucléotides insérés ou enlevés n’est pas un multiple de trois. Tous
les nucléotides situés en aval de la modification sont alors
regroupés en des codons erronés. Il en résulte un long fauxsens qui aboutit tôt ou tard à un non-sens et à une terminaison prématurée. À moins que le décalage du cadre de lecture
survienne très près de la fin du gène, il est presque certain
que la protéine ne sera pas fonctionnelle.
Les mutagènes
Les mutations peuvent avoir des causes diverses. Les erreurs
survenues lors de la réplication ou de la recombinaison de
l’ADN peuvent engendrer des substitutions de paires de nucléotides, des insertions, des délétions ou des mutations touchant
des parties plus longues de l’ADN. Si un nucléotide incorrect
est ajouté à la chaîne en cours de formation pendant la réplication, par exemple, la base sur ce nucléotide sera désappariée avec la base du nucléotide de l’autre brin. Dans de
nombreux cas, l’erreur sera corrigée par les systèmes de réparation que vous avez étudiés au chapitre 16. Sinon, la base
incorrecte sera utilisée comme matrice dans la réplication
suivante, causant une mutation. Les mutations résultant de
A
Val
A A
G
U A
G
Glu
C T T
ADN de l’hémoglobine normale
ARNm
ARNm
3
3
5
5
5
5
3
3
Hémoglobine normale
C
T
T
G A A
5
5
3
3
G
A
ADN de l’hémoglobine mutante
Hémoglobine de l’anémie
à hématies falciformes
L’hémoglobine
mutante porte
une valine (Val)
à la place d’un acide
glutamique (Glu).
Un codon de l’ARNm
mutant porte un U
au lieu d’un A.
Sur l’ADN, le brin
matrice (en haut)
de l’allèle mutant
(de l’anémie
à hématies
falciformes) porte
un A au lieu d’un T.
Hémoglobine normale
Hémoglobine de l’anémie à hématies falciformes
. Figure 17.23 L’origine moléculaire de l’anémie à hématies falciformes, une mutation
ponctuelle. La différence entre l’allèle qui entraîne l’anémie à hématies falciformes et l’allèle normal
consiste en une modification d’une seule paire de nucléotides de l’ADN.