

chapitre 17 Du gène à la protéine 393
molécule d’ARNm. Près du tiers de la masse d’un ribosome
est constitué de protéines ; le reste se compose d’ARNr, ce qui
représente trois molécules chez les Bactéries et quatre chez les
Eucaryotes. Comme la plupart des cellules contiennent des
milliers de ribosomes, l’ARNr est le type d’ARN cellulaire le
plus abondant.
Si les ribosomes des cellules bactériennes et eucaryotes
ont une structure et des fonctions très semblables, ceux des
Eucaryotes sont un peu plus gros, et leur composition moléculaire est quelque peu différente. Cette différence est importante pour lutter contre les infections causées par les bactéries,
car certains antibiotiques, dont la tétracycline et la streptomycine, ne se lient qu’aux protéines des ribosomes bactériens. Il est donc possible de paralyser les ribosomes des
cellules bactériennes, et donc de bloquer leur multiplication,
sans entraver la synthèse de protéines chez les Eucaryotes.
La structure d’un ribosome reflète sa fonction, qui est de
rapprocher les ARNm et les ARNt porteurs d’acides aminés.
Chaque ribosome comprend, outre un site de liaison à
l’ARNm, trois sites de liaison à l’ARNt, comme le montre la
figure 17.17. Le site P (site de liaison du peptidyl-ARNt)
retient l’ARNt qui porte la chaîne polypeptidique en cours
de synthèse. Le site A (site de liaison de l’aminoacyl-ARNt)
retient l’ARNt portant le prochain acide aminé qui viendra
se joindre à la chaîne. C’est à partir du site E (site de sortie,
exit) que l’ARNt quitte le ribosome. L’ensemble des sites du
ribosome permet de rapprocher l’ARNt et l’ARNm, de placer
le nouvel acide aminé de façon à l’ajouter à l’extrémité carboxyle du polypeptide en cours de synthèse et de catalyser
ensuite la formation de la liaison peptidique. Le polypeptide,
qui continue de s’allonger, émerge alors par un tunnel de
sortie dans la grande sous-unité ribosomique. Une fois sa synthèse terminée, c’est par cet orifice que le polypeptide passe
dans le cytosol.
Un grand nombre de preuves confirment de façon convain cante l’hypothèse selon laquelle la structure et les
fonctions de cet organite sont le fait
de l’ARNr et non celui des pro téines.
Les protéines, principalement localisées
en périphérie du ribosome, prennent
part aux modifications de la structure
des molécules d’ARNr lorsque celles-ci
effectuent la catalyse au cours de la traduction. L’ARN ribosomique est la principale composante de l’interface entre
les deux sous-unités ainsi que des sites
A et P, et c’est lui qui catalyse la formation de la liaison peptidique. On peut
donc considérer le ribosome comme un
énorme ribozyme !
La synthèse d’un polypeptide
La traduction, ou synthèse d’un polypeptide, comprend trois étapes principales,
qui rappellent celles de la transcription : il s’agit de l’initiation, de l’élongation et de la terminaison. Celles-ci ne
peuvent se dérouler qu’en présence de
« facteurs » protéiques qui les assistent pendant la traduction.
Certains aspects de l’initiation et de l’élongation de la chaîne
néces sitent également un apport énergétique fourni par l’hydrolyse de la guanosine triphosphate (GTP), une molécule
étroitement apparentée à l’ATP.
La liaison au ribosome
et l’initiation de la traduction
L’étape d’initiation (ou de démarrage) est l’étape la plus lente
de la synthèse d’un polypeptide. Elle met en jeu l’ARNm, un
ARNt portant le premier acide aminé du polypeptide dont la
formation va débuter et les deux sous-unités d’un ribosome
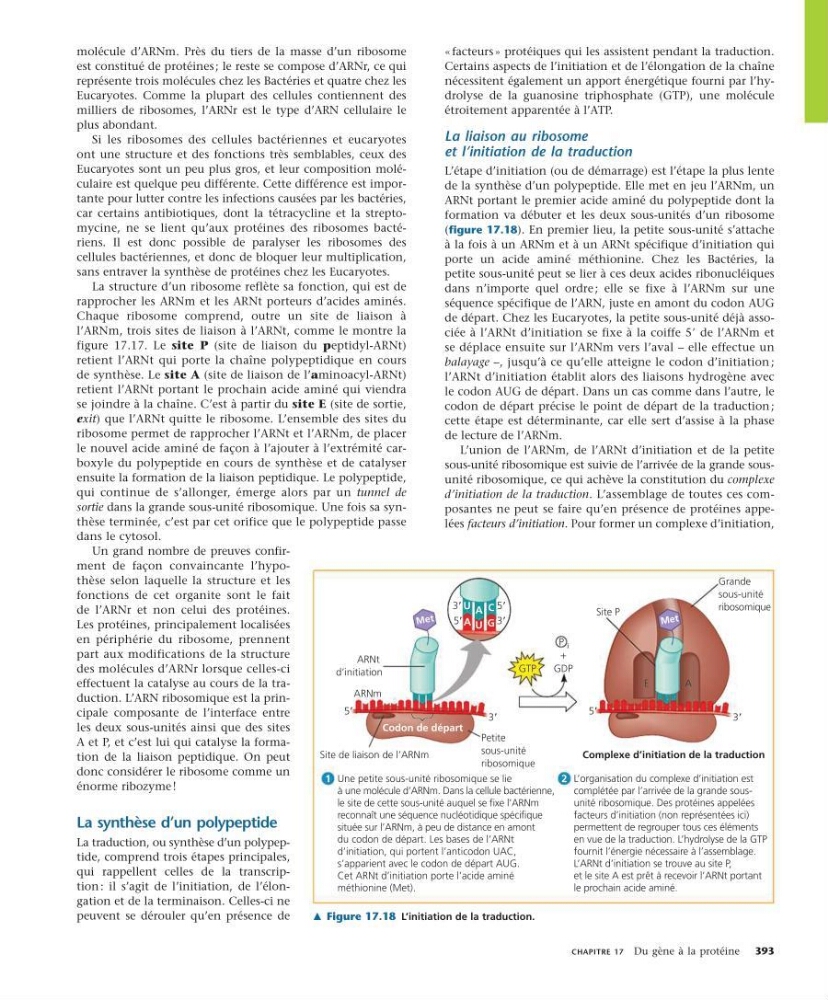
(figure 17.18). En premier lieu, la petite sous-unité s’attache
à la fois à un ARNm et à un ARNt spécifique d’initiation qui
porte un acide aminé méthionine. Chez les Bactéries, la
petite sous-unité peut se lier à ces deux acides ribonucléiques
dans n’importe quel ordre ; elle se fixe à l’ARNm sur une
séquence spécifique de l’ARN, juste en amont du codon AUG
de départ. Chez les Eucaryotes, la petite sous-unité déjà associée à l’ARNt d’initiation se fixe à la coiffe 59 de l’ARNm et
se déplace ensuite sur l’ARNm vers l’aval – elle effectue un
balayage –, jusqu’à ce qu’elle atteigne le codon d’initiation ;
l’ARNt d’initiation établit alors des liaisons hydrogène avec
le codon AUG de départ. Dans un cas comme dans l’autre, le
codon de départ précise le point de départ de la traduction ;
cette étape est déterminante, car elle sert d’assise à la phase
de lecture de l’ARNm.
L’union de l’ARNm, de l’ARNt d’initiation et de la petite
sous-unité ribosomique est suivie de l’arrivée de la grande sousunité ribosomique, ce qui achève la constitution du complexe
d’initiation de la traduction. L’assemblage de toutes ces composantes ne peut se faire qu’en présence de pro téines appelées facteurs d’initiation. Pour former un complexe d’initiation,
m Figure 17.18 L’initiation de la traduction.
ARNm
Site de liaison de l’ARNm
Complexe d’initiation de la traduction
Petite
sous-unité
ribosomique
Grande
sous-unité
ribosomique
Codon de départ
ARNt
d’initiation
GTP
GDP
3
5
Une petite sous-unité ribosomique se lie
à une molécule d’ARNm. Dans la cellule bactérienne,
le site de cette sous-unité auquel se fixe l’ARNm
reconnaît une séquence nucléotidique spécifique
située sur l’ARNm, à peu de distance en amont
du codon de départ. Les bases de l’ARNt
d’initiation, qui portent l’anticodon UAC,
s’apparient avec le codon de départ AUG.
Cet ARNt d’initiation porte l’acide aminé
méthionine (Met).
1
L’organisation du complexe d’initiation est
complétée par l’arrivée de la grande sousunité ribosomique. Des protéines appelées
facteurs d’initiation (non représentées ici)
permettent de regrouper tous ces éléments
en vue de la traduction. L’hydrolyse de la GTP
fournit l’énergie nécessaire à l’assemblage.
L’ARNt d’initiation se trouve au site P,
et le site A est prêt à recevoir l’ARNt portant
le prochain acide aminé.
2
Site P
M et
M et
A
E
3
5
3
5
5
3
U A C
A U G
P i