

368 trOiSiÈMe partie La génétique
Les nucléotides de l’aDN modifiés et l’évolution
évolutIon
La réplication fidèle du génome et la réparation de l’ADN sont importantes pour le fonctionnement des
organismes et pour la transmission à la génération suivante
d’un génome complet et exact. Le taux d’erreur après la « correc tion d’épreuves » et la réparation est négligeable, mais
quelques rares erreurs demeurent. Quand la réplication d’une
paire de nucléotides mal appariés est terminée, la modification de la séquence est permanente dans la molécule fille qui
porte le nucléotide incorrect, de même que dans toutes les
copies subsé quentes. Comme nous l’avons mentionné précédemment, un changement permanent de la séquence d’ADN
est appelé mutation.
Comme vous le verrez au chapitre 17, les mutations peuvent
modifier le phénotype d’un organisme. Et si elles se produisent
dans les cellules reproductrices (qui donnent naissance aux
gamètes), les mutations peuvent être transmises de génération en génération. La grande majorité de ces changements
sont néfastes, mais un très petit pourcentage peut être bénéfique. Dans un cas comme dans l’autre, les mutations sont la
source de variations sur lesquelles la sélection naturelle agit
pendant l’évolution et sont en définitive responsables de l’apparition de nouvelles espèces. (Vous en apprendrez davantage sur
ce processus dans la quatrième partie de ce volume.) L’équilibre entre la fidélité complète de la réplication ou de la réparation de l’ADN et un taux faible de mutations a permis, au
fil de longues périodes de temps, l’évolution d’une riche
diversité d’espèces qui peuplent la Terre aujourd’hui.
La réplication des extrémités
des molécules d’aDN
Malgré les possibilités impressionnantes des ADN polymérases, elles sont incapables de répliquer ou de réparer certaines
régions de l’ADN cellulaire. Lorsque l’ADN est linéaire, comme
dans le cas des chromosomes eucaryotes, le fait qu’une ADN
polymérase ne puisse ajouter des nucléotides qu’à l’extrémité
39 d’un polynucléotide préexistant pose ce qui semble être
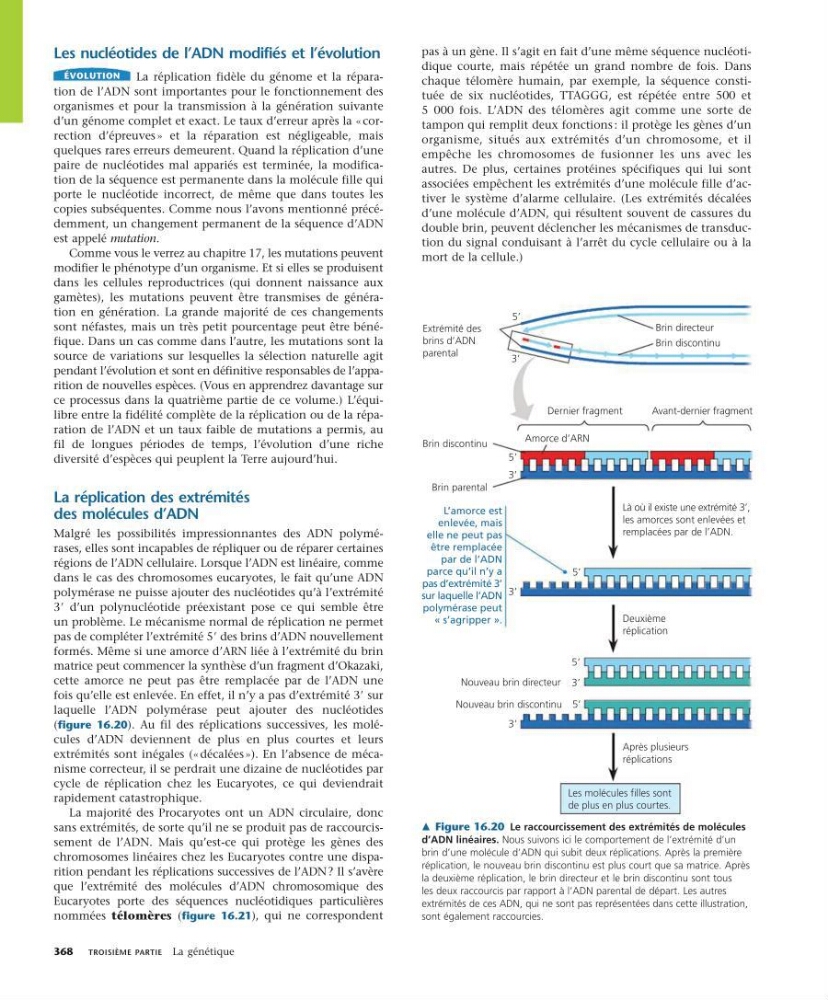
un problème. Le mécanisme normal de réplication ne permet
pas de compléter l’extrémité 59 des brins d’ADN nouvellement
formés. Même si une amorce d’ARN liée à l’extrémité du brin
matrice peut commencer la synthèse d’un fragment d’Okazaki,
cette amorce ne peut pas être remplacée par de l’ADN une
fois qu’elle est enlevée. En effet, il n’y a pas d’extrémité 39 sur
laquelle l’ADN polymérase peut ajouter des nucléotides
(figure 16.20). Au fil des réplications successives, les molécules d’ADN deviennent de plus en plus courtes et leurs
extrémités sont inégales (« décalées »). En l’absence de mécanisme correcteur, il se perdrait une dizaine de nucléotides par
cycle de réplication chez les Eucaryotes, ce qui deviendrait
rapidement catastrophique.
La majorité des Procaryotes ont un ADN circulaire, donc
sans extrémités, de sorte qu’il ne se produit pas de raccourcissement de l’ADN. Mais qu’estce qui protège les gènes des
chromosomes linéaires chez les Eucaryotes contre une disp arition pendant les réplications successives de l’ADN ? Il s’avère
que l’extrémité des molécules d’ADN chromosomique des
Eucaryotes porte des séquences nucléotidiques parti culières
nommées télomères (figure 16.21), qui ne correspondent
pas à un gène. Il s’agit en fait d’une même séquence nucléotidique courte, mais répétée un grand nombre de fois. Dans
chaque télomère humain, par exemple, la séquence constituée de six nucléotides, TTAGGG, est répétée entre 500 et
5 000 fois. L’ADN des télomères agit comme une sorte de
tampon qui remplit deux fonctions : il protège les gènes d’un
organisme, situés aux extrémités d’un chromosome, et il
empêche les chromosomes de fusionner les uns avec les
autres. De plus, certaines protéines spécifiques qui lui sont
associées empêchent les extrémités d’une molécule fille d’activer le système d’alarme cellulaire. (Les extrémités décalées
d’une molécule d’ADN, qui résultent souvent de cassures du
double brin, peuvent déclencher les mécanismes de transduction du signal conduisant à l’arrêt du cycle cellulaire ou à la
mort de la cellule.)
5’
5’
3’
Brin discontinu
Brin parental
Extrémité des
brins d’ADN
parental
Nouveau brin directeur
Nouveau brin discontinu
Amorce d’ARN
Dernier fragment
Avant-dernier fragment
Là où il existe une extrémité 3’,
les amorces sont enlevées et
remplacées par de l’ADN.
Deuxième
réplication
Après plusieurs
réplications
3’
5’
3’
3’
5’
5’
3’
L’amorce est
enlevée, mais
elle ne peut pas
être remplacée
par de l’ADN
parce qu’il n’y a
pas d’extrémité 3’
sur laquelle l’ADN
polymérase peut
« s’agripper ».
Les molécules filles sont
de plus en plus courtes.
Brin directeur
Brin discontinu
m Figure 16.20 Le raccourcissement des extrémités de molécules
d’ADN linéaires. Nous suivons ici le comportement de l’extrémité d’un
brin d’une molécule d’ADN qui subit deux réplications. Après la première
réplication, le nouveau brin discontinu est plus court que sa matrice. Après
la deuxième réplication, le brin directeur et le brin discontinu sont tous
les deux raccourcis par rapport à l’ADN parental de départ. Les autres
extrémités de ces ADN, qui ne sont pas représentées dans cette illustration,
sont également raccourcies.