

366 trOiSiÈMe partie La génétique
interactions entre les protéines du réplisome contribuent à
rendre le complexe plus efficace. Par exemple, par son interaction avec d’autres protéines, la primase joue apparemment
un rôle de frein moléculaire, ce qui ralentit la progression de
la fourche de réplication et coordonne les mises en place des
amorces et les vitesses de réplication sur les brins directeur et
discontinu. Deuxièmement, le complexe de réplication de
l’ADN est probablement stationnaire pendant le processus ;
c’est plutôt l’ADN qui peut se déplacer à travers le complexe
pendant la réplication. Dans les cellules eucaryotes, on croit
que de multiples exemplaires de ce complexe regroupés en
« usines » (ou foyers de réplication) pourraient se fixer à la
matrice nucléaire (un réseau de fibres occupant l’intérieur du
noyau). Des études récentes soutiennent l’hypothèse d’un
modèle dans lequel un dimère de polymérase, une molécule
sur chaque brin matrice, « remonte » l’ADN parental et expulse
simultanément les molécules filles d’ADN nouvellement produites (celle du brin directeur et celle du brin discontinu).
Des preuves additionnelles donnent à penser que la matrice
du brin discontinu s’enroule en boucle à travers le complexe,
ce qui permet d’inverser son orientation, faisant en sorte
que les deux brins matrices aient alors la même orientation
(figure 16.18).
La « correction d’épreuves »
et la réparation de l’aDN
La précision de la réplication de l’ADN ne résulte pas uniquement de la spécificité de l’appariement des bases azotées.
Dans le nouvel ADN d’une cellule fille produite par mitose, le
nombre d’erreurs n’est que d’une par 10
10
nucléotides (soit
10 milliards). Au départ, cependant, les erreurs d’appariement
entre les nouveaux nucléotides et ceux du brin matrice sont
100 000 fois plus nombreuses : elles sont de l’ordre de 1 sur
10
5
(100 000) nucléotides, ce qui est quand même très peu si
on considère la vitesse à laquelle se déroule le pro cessus de
réplication (de l’ordre de 500 nucléotides à la seconde, chez
les Bactéries). Pendant la réplication, l’ADN polymérase fait
ellemême la relecture de chacun des nucléotides ajoutés et le
compare à la matrice aussitôt qu’il est intégré au brin en
croissance. Lorsqu’elle trouve une paire erronée au cours de
cette « correction d’épreuves », elle enlève le nucléotide inadéquat et refait la synthèse. (Cette correction est analogue à
celle qui consiste à corriger une faute de frappe en supprimant la lettre erronée et en tapant ensuite la bonne lettre.)
Il arrive parfois que les nucléotides mal appariés échappent
à la vigilance de l’ADN polymérase durant la « correction
ADN pol III
Brin directeur
Brin discontinu
ADN pol III
ADN parental
ADN pol I
ADN ligase
Primase
Amorce
5Ј
5Ј
5Ј
5Ј
3Ј
5Ј
3Ј
3Ј
3Ј
3Ј
Une hélicase
déroule la double
hélice parentale.
1
Les molécules
de protéines fixatrices
d’ADN monocaténaire
stabilisent les brins matrices
qui ont été séparés.
2
Le brin directeur est synthétisé
de façon continue dans le sens 5Ј ¤ 3Ј
par l’ADN pol III.
3
L’ADN pol I enlève l’amorce de l’extrémité 5Ј
du deuxième fragment et le remplace par
des nucléotides d’ADN qu’elle ajoute un à un
à l’extrémité 3Ј du troisième fragment. Le
remplacement du dernier nucléotide d’ARN
par l’ADN laisse une extrémité 3Ј libre au squelette
désoxyribose-phosphate.
6
L’ADN pol III termine la synthèse du quatrième
fragment. Quand elle atteint l’amorce d’ARN sur
le troisième fragment, elle se détache et commence
à ajouter des nucléotides d’ADN à l’extrémité 3Ј
de l’amorce du cinquième fragment.
5
La primase commence la synthèse
de l’amorce d’ARN pour le cinquième
fragment d’Okazaki.
4
L’ADN ligase joint
l’extrémité 3Ј du second
fragment à l’extrémité 5Ј
du premier fragment.
7
1
2
3
4
Origine de réplication
Vue d’ensemble
Sens général
de la réplication
Brin directeur
Brin discontinu
Brin discontinu
Brin directeur
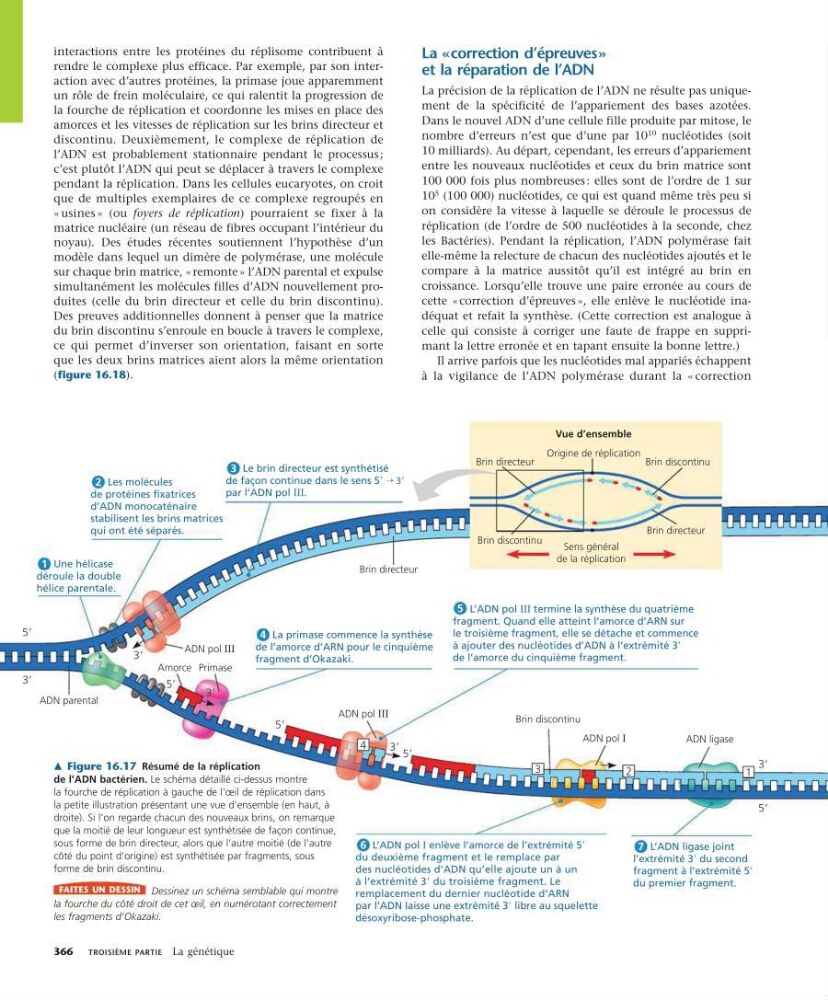
m Figure 16.17 Résumé de la réplication
de l’ADN bactérien. Le schéma détaillé ci-dessus montre
la fourche de réplication à gauche de l’œil de réplication dans
la petite illustration présentant une vue d’ensemble (en haut, à
droite). Si l’on regarde chacun des nouveaux brins, on remarque
que la moitié de leur longueur est synthétisée de façon continue,
sous forme de brin directeur, alors que l’autre moitié (de l’autre
côté du point d’origine) est synthétisée par fragments, sous
forme de brin discontinu.
FAItes un dessIn Dessinez un schéma semblable qui montre
la fourche du côté droit de cet œil, en numérotant correctement
les fragments d’Okazaki.