

chapitre 16 Les bases moléculaires de l’hérédité 357
Ces deux découvertes ont prouvé que l’ADN n’était pas
formé selon le modèle des tétranucléotides, duquel aurait dû
découler un rapport de 1:1:1:1 entre les quatre bases. Elles ont
par la suite été appelées règles de Chargaff : (1) la composition
des bases varie d’une espèce à l’autre ; (2) pour une espèce
donnée, le nombre de bases A est égal au nombre de bases T,
d’une part, et le nombre de bases G est égal au nombre de
bases C, d’autre part. Les fondements de ces règles sont restés
inexpliqués jusqu’à la découverte de la double hélice.
La modélisation structurale de l’aDN :
recherche scientifique
Une fois que les biologistes eurent compris que l’ADN constituait bel et bien le matériel génétique, il leur a fallu déterminer
de quelle manière sa structure pouvait expliquer son rôle dans
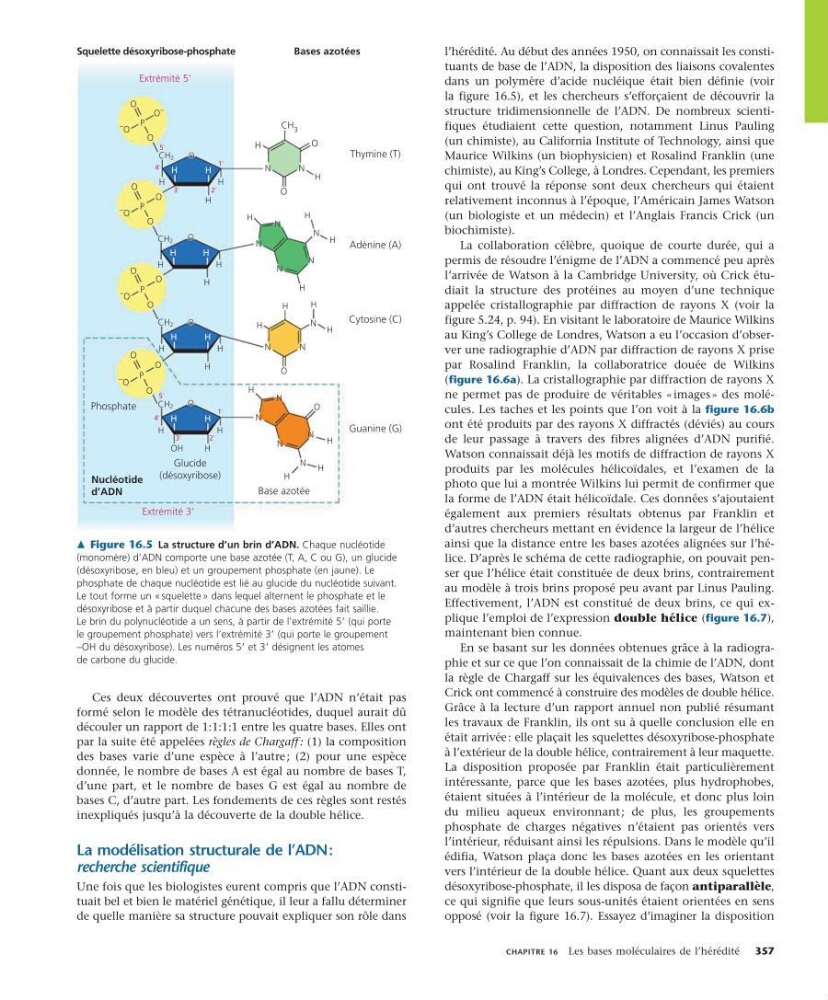
l’hérédité. Au début des années 1950, on connaissait les constituants de base de l’ADN, la disposition des liaisons covalentes
dans un polymère d’acide nucléique était bien définie (voir
la figure 16.5), et les chercheurs s’efforçaient de découvrir la
structure tridimensionnelle de l’ADN. De nombreux scientifiques étudiaient cette question, notamment Linus Pauling
(un chimiste), au California Institute of Technology, ainsi que
Maurice Wilkins (un biophysicien) et Rosalind Franklin (une
chimiste), au King’s College, à Londres. Cependant, les premiers
qui ont trouvé la réponse sont deux chercheurs qui étaient
relativement inconnus à l’époque, l’Américain James Watson
(un biologiste et un médecin) et l’Anglais Francis Crick (un
biochimiste).
La collaboration célèbre, quoique de courte durée, qui a
permis de résoudre l’énigme de l’ADN a commencé peu après
l’arrivée de Watson à la Cambridge University, où Crick étudiait la structure des protéines au moyen d’une technique
appelée cristallographie par diffraction de rayons X (voir la
figure 5.24, p. 94). En visitant le laboratoire de Maurice Wilkins
au King’s College de Londres, Watson a eu l’occasion d’observer une radiographie d’ADN par diffraction de rayons X prise
par Rosalind Franklin, la collaboratrice douée de Wilkins
(figure 16.6a). La cristallographie par diffraction de rayons X
ne permet pas de produire de véritables « images » des molécules. Les taches et les points que l’on voit à la figure 16.6b
ont été produits par des rayons X diffractés (déviés) au cours
de leur passage à travers des fibres alignées d’ADN purifié.
Watson connaissait déjà les motifs de diffraction de rayons X
produits par les molécules hélicoïdales, et l’examen de la
photo que lui a montrée Wilkins lui permit de confirmer que
la forme de l’ADN était hélicoïdale. Ces données s’ajoutaient
également aux premiers résultats obtenus par Franklin et
d’autres chercheurs mettant en évidence la largeur de l’hélice
ainsi que la distance entre les bases azotées alignées sur l’hélice. D’après le schéma de cette radiographie, on pouvait penser que l’hélice était constituée de deux brins, contrairement
au modèle à trois brins proposé peu avant par Linus Pauling.
Effectivement, l’ADN est constitué de deux brins, ce qui explique l’emploi de l’expression double hélice (figure 16.7),
maintenant bien connue.
En se basant sur les données obtenues grâce à la radiographie et sur ce que l’on connaissait de la chimie de l’ADN, dont
la règle de Chargaff sur les équivalences des bases, Watson et
Crick ont commencé à construire des modèles de double hélice.
Grâce à la lecture d’un rapport annuel non publié résumant
les travaux de Franklin, ils ont su à quelle conclusion elle en
était arrivée : elle plaçait les squelettes désoxyribosephosphate
à l’extérieur de la double hélice, contrairement à leur maquette.
La disposition proposée par Franklin était particulièrement
inté ressante, parce que les bases azotées, plus hydrophobes,
étaient situées à l’intérieur de la molécule, et donc plus loin
du milieu aqueux environnant ; de plus, les groupements
phos phate de charges négatives n’étaient pas orientés vers
l’intérieur, réduisant ainsi les répulsions. Dans le modèle qu’il
édifia, Watson plaça donc les bases azotées en les orientant
vers l’inté rieur de la double hélice. Quant aux deux sque lettes
désoxyribosephosphate, il les disposa de façon antipa ral lèle,
ce qui signifie que leurs sousunités étaient orientées en sens
opposé (voir la figure 16.7). Essayez d’imaginer la disposition
O
–
O
– O
P
– O
O
O
P
– O
O
O
O
O
O
P
– O
O
O
O
P
Bases azotées
Guanine (G)
Cytosine (C)
Adénine (A)
Thymine (T)
N
N
N
N
N
N
O
O
N
H
H
H
H
H
N H
H
H
H
H
O
O
CH 3
H
N H
H
N
N
N
N
H
Base azotée
Nucléotide
d’ADN
Squelette désoxyribose-phosphate
H
H
H
H
CH2
CH2
CH2
Extrémité 5‘
Extrémité 3‘
5‘
1‘
2‘
3‘
4‘
Glucide
(désoxyribose)
Phosphate
H
H
H
H
H
H
O O
H
H
H
H
H
CH2
O O
O O
O O
H
H
H
OH
H
H
N
N
5‘
1‘
3‘
2‘
4‘
m Figure 16.5 La structure d’un brin d’ADN. Chaque nucléotide
(monomère) d’ADN comporte une base azotée (T, A, C ou G), un glucide
(désoxyribose, en bleu) et un groupement phosphate (en jaune). Le
phosphate de chaque nucléotide est lié au glucide du nucléotide suivant.
Le tout forme un « squelette » dans lequel alternent le phosphate et le
désoxyribose et à partir duquel chacune des bases azotées fait saillie.
Le brin du polynucléotide a un sens, à partir de l’extrémité 59 (qui porte
le groupement phosphate) vers l’extrémité 39 (qui porte le groupement
–OH du désoxyribose). Les numéros 59 et 39 désignent les atomes
de carbone du glucide.