

292 trOiSiÈMe partie La génétique
L’assortiment indépendant
des chromosomes
Chez les organismes à reproduction sexuée, un des mécanismes
qui créent une variation génétique est l’orientation aléatoire
des paires de chromosomes homologues à la métaphase de la
méiose I. Au cours de cette étape, toutes les paires de chromosomes homologues (qui comportent chacune un chromosome maternel dédoublé et un chromosome paternel dédoublé)
sont regroupées sur la plaque équatoriale. (Notez que les termes
maternel et paternel font référence, respectivement, à la mère
et au père de l’individu dont les cellules subissent la méiose.)
Chaque paire peut s’orienter de telle sorte que son homologue maternel ou son homologue paternel se trouve le plus
près d’un pôle donné : son orientation est donc aléatoire
(comme si sa place était jouée à pile ou face). Il y a donc 50 %
de chances qu’une cellule fille de la méiose I reçoive le chromosome maternel d’une paire de chromosomes homologues
donnée, et 50 % de chances qu’elle reçoive le chromosome
paternel de la même paire.
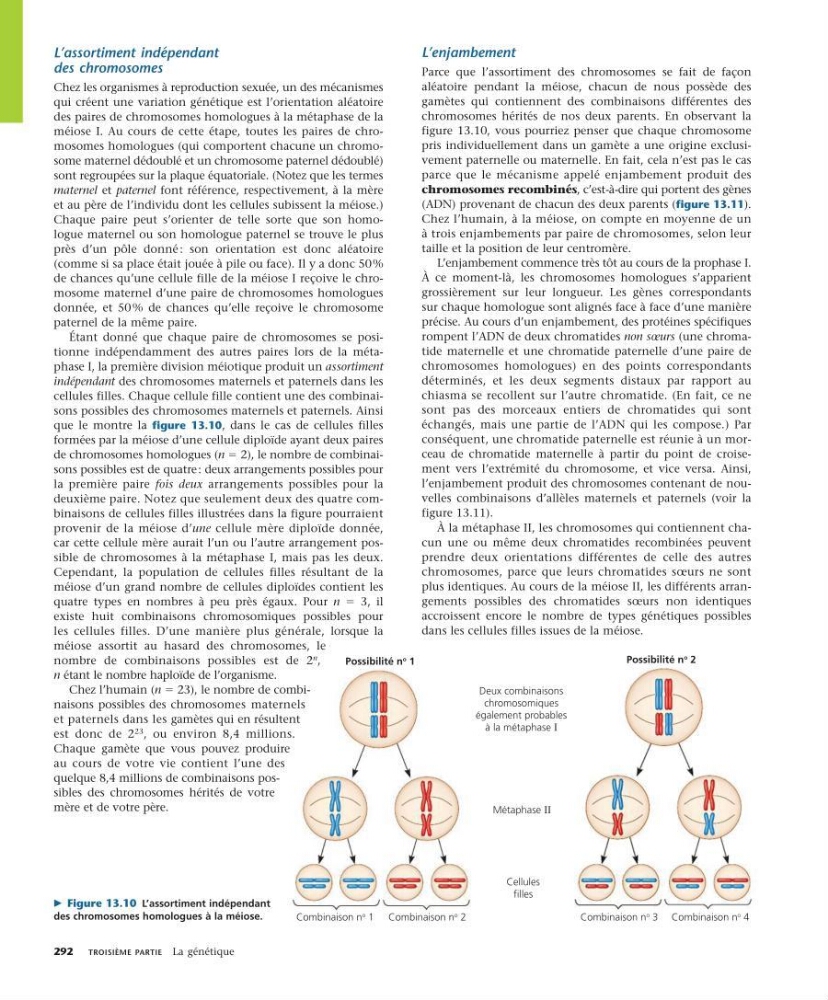
Étant donné que chaque paire de chromosomes se positionne indépendamment des autres paires lors de la métaphase I, la première division méiotique produit un assortiment
indépendant des chromosomes maternels et paternels dans les
cellules filles. Chaque cellule fille contient une des combinaisons possibles des chromosomes maternels et paternels. Ainsi
que le montre la figure 13.10, dans le cas de cellules filles
formées par la méiose d’une cellule diploïde ayant deux paires
de chromosomes homologues (n 5 2), le nombre de combinaisons possibles est de quatre : deux arrangements possibles pour
la première paire fois deux arrangements possibles pour la
deuxième paire. Notez que seulement deux des quatre combinaisons de cellules filles illustrées dans la figure pourraient
provenir de la méiose d’une cellule mère diploïde donnée,
car cette cellule mère aurait l’un ou l’autre arrangement possible de chromosomes à la métaphase I, mais pas les deux.
Cependant, la population de cellules filles résultant de la
méiose d’un grand nombre de cellules diploïdes contient les
quatre types en nombres à peu près égaux. Pour n 5 3, il
existe huit combinaisons chromosomiques possibles pour
les cellules filles. D’une manière plus générale, lorsque la
méiose assortit au hasard des chromosomes, le
nombre de combi naisons possibles est de 2
n
,
n étant le nombre haploïde de l’organisme.
Chez l’humain (n 5 23), le nombre de combinaisons possibles des chromosomes maternels
et paternels dans les gamètes qui en résultent
est donc de 2
23
, ou environ 8,4 millions.
Chaque gamète que vous pouvez produire
au cours de votre vie contient l’une des
quelque 8,4 millions de combinaisons possibles des chromosomes hérités de votre
mère et de votre père.
L’enjambement
Parce que l’assortiment des chromosomes se fait de façon
aléatoire pendant la méiose, chacun de nous possède des
gamètes qui contiennent des combinaisons différentes des
chromosomes hérités de nos deux parents. En observant la
figure 13.10, vous pourriez penser que chaque chromosome
pris individuellement dans un gamète a une origine exclusivement paternelle ou maternelle. En fait, cela n’est pas le cas
parce que le mécanisme appelé enjambement produit des
chromosomes recombinés, c’est-à-dire qui portent des gènes
(ADN) provenant de chacun des deux parents (figure 13.11).
Chez l’humain, à la méiose, on compte en moyenne de un
à trois enjambements par paire de chromosomes, selon leur
taille et la position de leur centromère.
L’enjambement commence très tôt au cours de la prophase I.
À ce moment-là, les chromosomes homologues s’apparient
grossièrement sur leur longueur. Les gènes correspondants
sur chaque homologue sont alignés face à face d’une manière
précise. Au cours d’un enjambement, des protéines spécifiques
rompent l’ADN de deux chromatides non sœurs (une chromatide maternelle et une chromatide paternelle d’une paire de
chromosomes homologues) en des points correspondants
déterminés, et les deux segments distaux par rapport au
chiasma se recollent sur l’autre chromatide. (En fait, ce ne
sont pas des morceaux entiers de chromatides qui sont
échangés, mais une partie de l’ADN qui les compose.) Par
conséquent, une chromatide paternelle est réunie à un morceau de chromatide maternelle à partir du point de croisement vers l’extrémité du chromosome, et vice versa. Ainsi,
l’enjambement produit des chromosomes contenant de nouvelles combinaisons d’allèles maternels et paternels (voir la
figure 13.11).
À la métaphase II, les chromosomes qui contiennent chacun une ou même deux chromatides recombinées peuvent
prendre deux orientations différentes de celle des autres
chromosomes, parce que leurs chromatides sœurs ne sont
plus identiques. Au cours de la méiose II, les différents arrangements possibles des chromatides sœurs non identiques
accroissent encore le nombre de types génétiques possibles
dans les cellules filles issues de la méiose.
c Figure 13.10 L’assortiment indépendant
des chromosomes homologues à la méiose.
Combinaison n
o 1 Combinaison n
o 2
Combinaison n
o 3 Combinaison n
o 4
Deux combinaisons
chromosomiques
également probables
à la métaphase I
Possibilité n
o 1
Possibilité n
o 2
Métaphase II
Cellules
filles