

246 DeUXiÈMe partie La cellule
De fait, la quantité de Ca
21
dans le sang et à l’extérieur des
cellules est souvent 10 000 fois supérieure à celle du cytosol.
Des pompes protéiques transportent activement les ions calcium hors de la cellule, ou encore du cytosol au réticulum
endoplasmique (et, dans certaines conditions, aux mitochondries et aux chloroplastes). Par conséquent, la concentration
de calcium dans le RE est habituellement bien supérieure à
celle du cytosol. Comme ce dernier contient une faible concentration de calcium, une toute petite augmentation ou une
diminution infime du nombre de ses ions calcium modifie de
manière significative la concentration de cet élément.
En réponse à un signal et grâce à un mécanisme libérant des
ions Ca
21
du RE lisse, la concentration de calcium peut augmenter dans le cytosol. Une des voies qui conduisent à cet
état fait intervenir deux autres seconds messagers, l’inositol
triphosphate (IP 3 ) et le diacylglycérol (DAG). Ceux-ci
dérivent de l’hydrolyse d’un phosphoglycérolipide particulier
de la bicouche lipidique de la membrane plasmique, le PIP 2
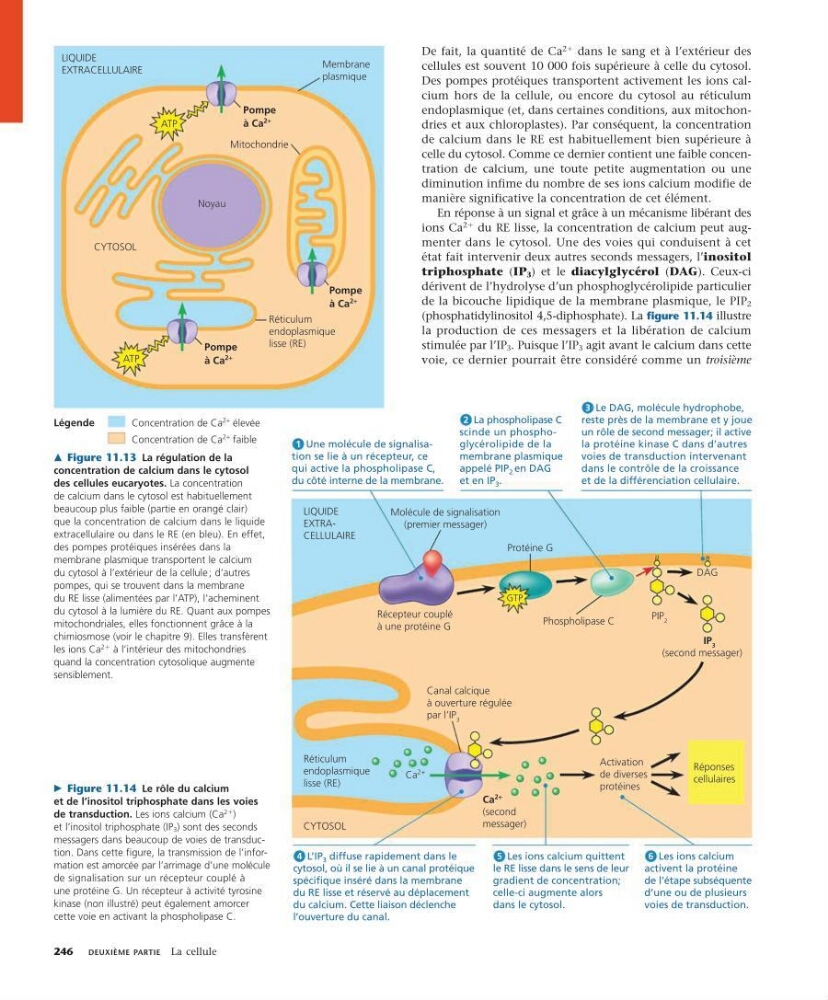
(phosphatidylinositol 4,5-diphosphate). La figure 11.14 illustre
la production de ces messagers et la libération de calcium
stimulée par l’IP 3 . Puisque l’IP 3 agit avant le calcium dans cette
voie, ce dernier pourrait être considéré comme un troisième
m Figure 11.13 La régulation de la
concentration de calcium dans le cytosol
des cellules eucaryotes. La concentration
de calcium dans le cytosol est habituellement
beaucoup plus faible (partie en orangé clair)
que la concentration de calcium dans le liquide
extracellulaire ou dans le RE (en bleu). En effet,
des pompes protéiques insérées dans la
membrane plasmique transportent le calcium
du cytosol à l’extérieur de la cellule ; d’autres
pompes, qui se trouvent dans la membrane
du RE lisse (alimentées par l’ATP), l’acheminent
du cytosol à la lumière du RE. Quant aux pompes
mitochondriales, elles fonctionnent grâce à la
chimiosmose (voir le chapitre 9). Elles transfèrent
les ions Ca
21 à l’intérieur des mitochondries
quand la concentration cytosolique augmente
sensiblement.
Mitochondrie
ATP
ATP
Pompe
à Ca
2+
Réticulum
endoplasmique
lisse (RE)
Pompe
à Ca
2+
Pompe
à Ca
2+
Membrane
plasmique
LIQUIDE
EXTRACELLULAIRE
CYTOSOL
Noyau
Légende
Concentration de Ca
2 élevée
Concentration de Ca
2 faible
IP 3
(second messager)
Activation
de diverses
protéines
Réponses
cellulaires
Ca
2+
(second
messager)
Protéine G
Phospholipase C
PIP 2
DAG
Récepteur couplé
à une protéine G
Réticulum
endoplasmique
lisse (RE)
LIQUIDE
EXTRACELLULAIRE
CYTOSOL
Canal calcique
à ouverture régulée
par l’IP 3
Ca
2+
Molécule de signalisation
(premier messager)
GTP
Une molécule de signalisation se lie à un récepteur, ce
qui active la phospholipase C,
du côté interne de la membrane.
1
La phospholipase C
scinde un phosphoglycérolipide de la
membrane plasmique
appelé PIP 2 en DAG
et en IP 3 .
2
Le DAG, molécule hydrophobe,
reste près de la membrane et y joue
un rôle de second messager; il active
la protéine kinase C dans d’autres
voies de transduction intervenant
dans le contrôle de la croissance
et de la différenciation cellulaire.
3
4 L’IP 3 diffuse rapidement dans le
cytosol, où il se lie à un canal protéique
spécifique inséré dans la membrane
du RE lisse et réservé au déplacement
du calcium. Cette liaison déclenche
l’ouverture du canal.
4
4 Les ions calcium quittent
le RE lisse dans le sens de leur
gradient de concentration;
celle-ci augmente alors
dans le cytosol.
5
4 Les ions calcium
activent la protéine
de l’étape subséquente
d’une ou de plusieurs
voies de transduction.
6
c Figure 11.14 Le rôle du calcium
et de l’inositol triphosphate dans les voies
de transduction. Les ions calcium (Ca
21
)
et l’inositol triphosphate (IP 3 ) sont des seconds
messagers dans beaucoup de voies de transduction. Dans cette figure, la transmission de l’information est amorcée par l’arrimage d’une molécule
de signalisation sur un récepteur couplé à
une protéine G. Un récepteur à activité tyrosine
kinase (non illustré) peut également amorcer
cette voie en activant la phospholipase C.