

244 DeUXiÈMe partie La cellule
peut en contenir plusieurs centaines de types différents dans
son cytoplasme ou dans sa membrane plasmique, chacune
phosphorylant un substrat protéique particulier. Ensemble,
elles contrôlent probablement une proportion élevée des milliers de protéines renfermées dans une cellule. Parmi celles-ci
figurent les protéines qui régissent la reproduction cellulaire.
Le mauvais fonctionnement de telles kinases cause souvent
une croissance cellulaire anormale et favorise la cancérisation.
Les protéines phosphatases jouent également un rôle
important dans la cascade de phosphorylations. On a identifié plus d’une centaine de phosphatases différentes chez
l’humain. Ces enzymes retirent rapidement les groupements
phosphate des protéines, un processus appelé déphosphorylation ; certaines phosphatases sont très spécifiques quant
à leur substrat, alors que d’autres déphosphorylent plusieurs
protéines différentes. Lorsqu’elles inactivent des protéines
kinases en les déphosphorylant, les phosphatases désactivent
la voie de transduction quand le signal initial disparaît. Les
phosphatases rendent également les protéines kinases disponibles à nouveau, ce qui permet à la cellule de répondre
une nouvelle fois à un signal extracellulaire. Le système de
phosphorylation-déphosphorylation agit donc comme un
interrupteur moléculaire qui active ou inactive les processus
en cours dans la cellule, selon les besoins. En tout temps,
l’activité d’une protéine donnée contrôlée par phosphorylation repose sur l’équilibre, au sein de la cellule, entre la
proportion de protéines kinases actives et celle de protéines
phosphatases actives.
Les petites molécules et les ions
servant de seconds messagers
Tous les éléments d’une voie de transduction ne sont pas nécessairement des protéines. De petites molécules solubles d’origine non protéique et des ions interviennent aussi dans de
nombreuses voies de transduction. Ils sont appelés seconds
messagers (par opposition aux « premiers messagers » que sont
les molécules de signalisation extracellulaires qui s’attachent
aux récepteurs membranaires). Étant donné leur petite taille
et leur hydrosolubilité, ils diffusent facilement dans le milieu
intracellulaire. Par exemple, un second messager appelé AMP
cyclique transmet l’information du signal généré par l’adrénaline à travers la membrane plasmique d’une cellule hépatique ou musculaire jusqu’à son cytoplasme. Cette opération
déclenche la dégradation du glycogène à l’intérieur de la
cellule cible. Les seconds messagers prennent part aux voies
amorcées par les récepteurs couplés à une protéine G et à celles
amorcées par les récepteurs à activité tyrosine kinase. Les
deux seconds messagers les plus courants sont l’AMP cyclique
et les ions calcium (Ca
2+
). La concentration cytosolique de
ces substances influe sur une grande variété d’intermédiaires
protéiques.
L’AMP cyclique
Comme on l’a vu à la page 236, après avoir établi que
l’adrénaline cause la dégradation du glycogène à l’intérieur
d’une cellule, et ce, sans traverser la membrane plasmique,
Earl Sutherland s’est mis à chercher un « second messager »
(l’expression est de lui) responsable de la transmission de l’information entre la membrane plasmique et les voies métaboliques du cytoplasme.
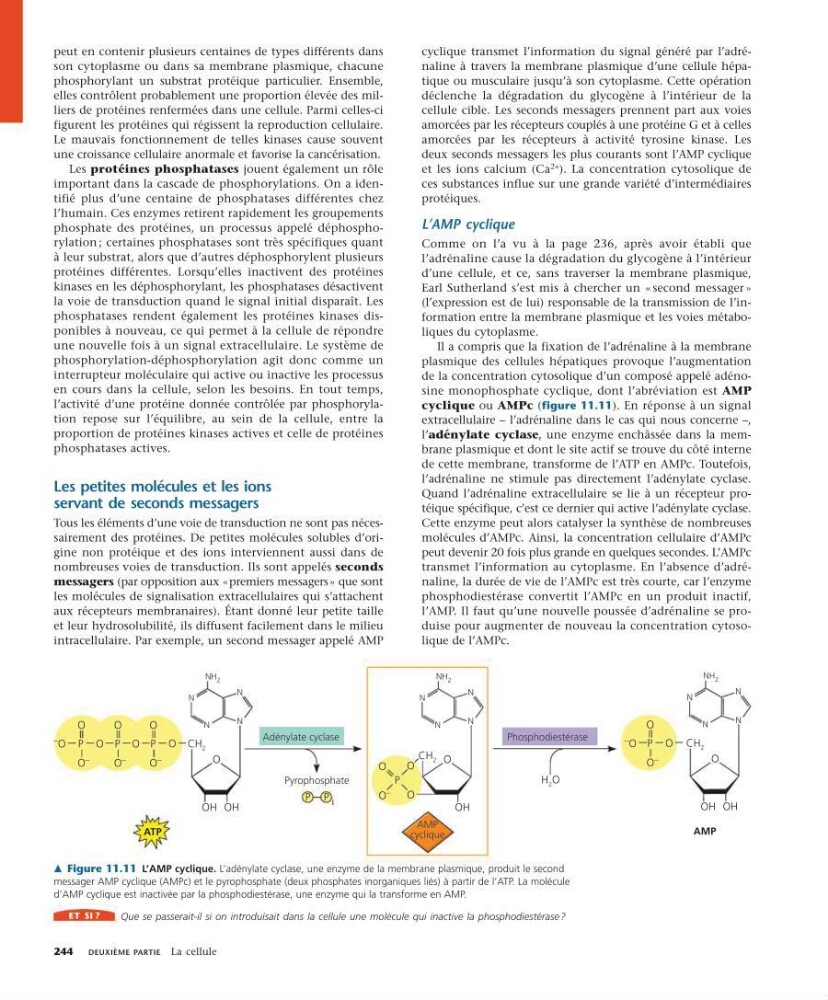
Il a compris que la fixation de l’adrénaline à la membrane
plasmique des cellules hépatiques provoque l’augmentation
de la concentration cytosolique d’un composé appelé adénosine monophosphate cyclique, dont l’abréviation est AMP
cyclique ou AMPc (figure 11.11). En réponse à un signal
extracellulaire – l’adrénaline dans le cas qui nous concerne –,
l’adénylate cyclase, une enzyme enchâssée dans la membrane plasmique et dont le site actif se trouve du côté interne
de cette membrane, transforme de l’ATP en AMPc. Toutefois,
l’adrénaline ne stimule pas directement l’adénylate cyclase.
Quand l’adrénaline extracellulaire se lie à un récepteur protéique spécifique, c’est ce dernier qui active l’adénylate cyclase.
Cette enzyme peut alors catalyser la synthèse de nombreuses
molécules d’AMPc. Ainsi, la concentration cellulaire d’AMPc
peut devenir 20 fois plus grande en quelques secondes. L’AMPc
transmet l’information au cytoplasme. En l’absence d’adrénaline, la durée de vie de l’AMPc est très courte, car l’enzyme
phosphodiestérase convertit l’AMPc en un produit inactif,
l’AMP. Il faut qu’une nouvelle poussée d’adrénaline se produise pour augmenter de nouveau la concentration cytosolique de l’AMPc.
m Figure 11.11 L’AMP cyclique. L’adénylate cyclase, une enzyme de la membrane plasmique, produit le second
messager AMP cyclique (AMPc) et le pyrophosphate (deux phosphates inorganiques liés) à partir de l’ATP. La molécule
d’AMP cyclique est inactivée par la phosphodiestérase, une enzyme qui la transforme en AMP.
et sI ?
Que se passerait-il si on introduisait dans la cellule une molécule qui inactive la phosphodiestérase ?
H 2 O
Adénylate cyclase
Pyrophosphate
AMP
OH OH
O
O
O
O
O –
O –
O –
O
P
– O
O P
P
O
CH 2
O
O –
O
P
O
NH 2
N
N
N
N
OH OH
O
O
O –
O
P
– O
CH 2
NH 2
N
N
N
N
OH
O
CH 2
NH 2
N
N
N
N
Phosphodiestérase
P P i
AMP
cyclique
ATP