

202 DeUXiÈMe partie La cellule
La biosynthèse (voies anaboliques)
Les cellules ont besoin d’énergie, mais aussi de matière. Les
molécules organiques de la nourriture ne sont pas toutes destinées à l’oxydation et à la synthèse de l’ATP. En effet, la nourriture doit fournir aux cellules non seulement des kilojoules,
mais aussi les chaînes carbonées indispensables à la fabrication
des molécules structurales. Certains monomères organiques
issus de la digestion peuvent être utilisés directement. Par
exemple, les acides aminés provenant de l’hydrolyse des protéines alimentaires peuvent servir de monomères dans la synthèse des protéines de l’organisme. Mais il arrive fréquemment
que celui-ci ait besoin de molécules particulières que la nourriture ne lui fournit pas. Les produits intermédiaires de la
glycolyse et du cycle de l’acide citrique peuvent alors être
détournés vers les voies anaboliques et servir de précurseurs à
la synthèse des molécules nécessaires aux cellules. Le corps
humain, par exemple, peut synthétiser environ la moitié des
20 acides aminés en modifiant des composés détournés du
cycle de l’acide citrique ; l’autre moitié, soit les « acides aminés essentiels », doit provenir de l’alimentation. De même, il
peut fabriquer du glucose à partir du pyruvate et des acides
gras à partir de l’acétyl-CoA. En outre, les produits des premières étapes de la glycolyse peuvent servir d’intermédiaires
dans la synthèse des nucléotides. Il va sans dire que ces voies
anaboliques, ou de biosynthèse, ne produisent pas d’ATP :
au contraire, elles en consomment. Il faut aussi noter qu’une
voie anabo lique n’est pas toujours identique à la même voie
catabolique inversée. Il arrive en effet que certaines réactions
d’une voie anabo lique diffèrent de la voie catabolique et
fassent intervenir d’autres enzymes.
Enfin, la glycolyse et le cycle de l’acide citrique permettent
à nos cellules de convertir certaines molécules selon les besoins
et les circonstances. Par exemple, le dihydroxyacétone phosphate, un produit intermédiaire de la glycolyse (voir la
figure 9.9, étape 5), peut être converti en un des principaux
précurseurs des lipides. Si notre apport alimentaire dépasse
nos besoins, nous engraissons, même si notre régime ne comporte pas de matières grasses. Le métabolisme est un processus complexe, polyvalent et adaptable. Mais il faut bien
comprendre que tout, dans le métabolisme, est d’abord une
affaire d’enzymes. Si l’enzyme indispensable à une réaction
n’est pas présente, la réaction ne se produira pas. C’est pourquoi, si les acides gras ne peuvent être convertis en glucose
ni chez l’humain ni chez la plupart des animaux, c’est en raison de l’absence de l’enzyme qui permettrait de transformer
l’acétyl-CoA en acide pyruvique.
La régulation de la respiration cellulaire
par des mécanismes de rétro-inhibition
L’économie métabolique obéit aux lois fondamentales de
l’offre et de la demande. La cellule ne gaspille pas d’énergie à
produire davantage d’une substance qu’il ne lui en faut. Par
exemple, s’il y a un surplus d’un acide aminé donné, la voie
anabolique qui en assure la synthèse à partir d’un produit
intermédiaire du cycle de l’acide citrique se ferme. Cette régulation repose principalement sur un mécanisme de rétroinhibition : le produit terminal de la voie anabolique inhibe
l’enzyme qui catalyse la première étape de cette voie (voir la
figure 8.21, p. 178). L’organisme évite ainsi de consacrer des
produits intermédiaires à des usages non essentiels.
La cellule gère aussi son catabolisme. Si elle travaille dur et
que sa concentration en ATP commence à diminuer, la respiration cellulaire s’accélère. Quand il y a suffisamment
d’ATP pour satisfaire à la demande, la respiration cellulaire
ralentit, ce qui permet à la cellule d’économiser de précieuses molécules organiques en vue d’autres fonctions. Ici encore,
la régulation porte principalement sur l’activité d’enzymes
intervenant en des points stratégiques de la voie catabolique.
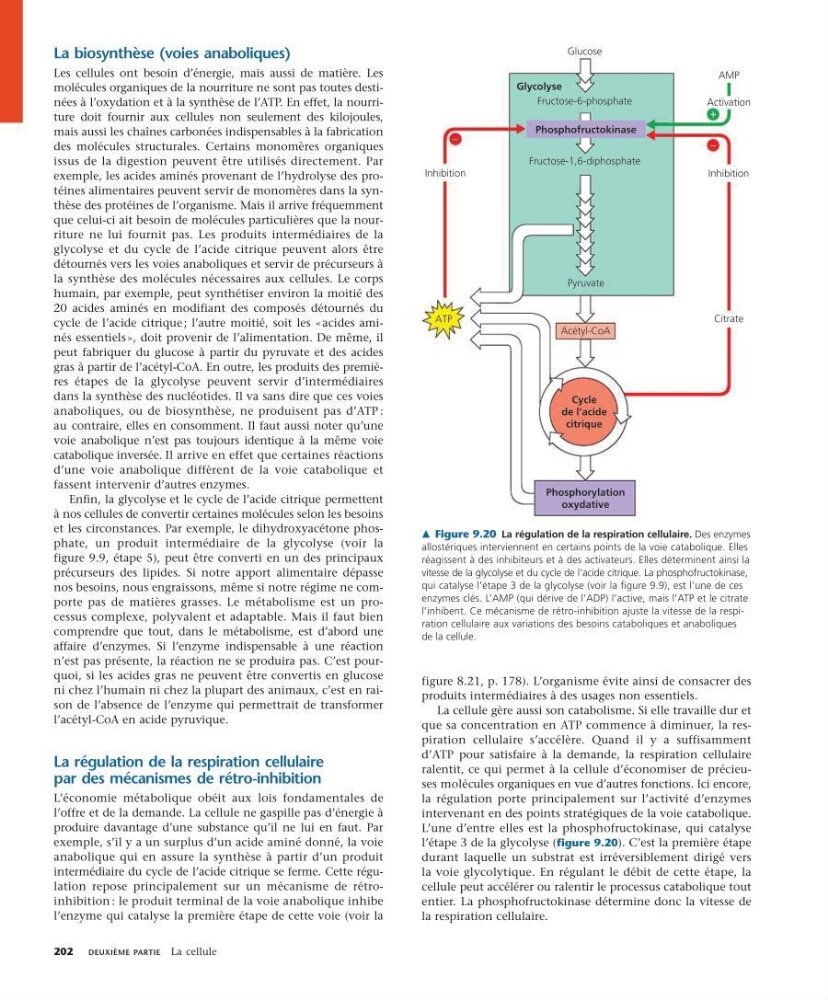
L’une d’entre elles est la phosphofructokinase, qui catalyse
l’étape 3 de la glycolyse (figure 9.20). C’est la première étape
durant laquelle un substrat est irréversiblement dirigé vers
la voie glycolytique. En régulant le débit de cette étape, la
cellule peut accélérer ou ralentir le processus catabolique tout
entier. La phosphofructokinase détermine donc la vitesse de
la respiration cellulaire.
m Figure 9.20 La régulation de la respiration cellulaire. Des enzymes
allostériques interviennent en certains points de la voie catabolique. Elles
réagissent à des inhibiteurs et à des activateurs. Elles déterminent ainsi la
vitesse de la glycolyse et du cycle de l’acide citrique. La phosphofructokinase,
qui catalyse l’étape 3 de la glycolyse (voir la figure 9.9), est l’une de ces
enzymes clés. L’AMP (qui dérive de l’ADP) l’active, mais l’ATP et le citrate
l’inhibent. Ce mécanisme de rétro-inhibition ajuste la vitesse de la respiration cellulaire aux variations des besoins cataboliques et anaboliques
de la cellule.
−
−
+
ATP
Pyruvate
Glucose
Activation
Inhibition
Inhibition
Citrate
Fructose-6-phosphate
Glycolyse
Fructose-1,6-diphosphate
AMP
Phosphofructokinase
Phosphorylation
oxydative
Acétyl-CoA
Cycle
de l’acide
citrique