

chapitre 8 Introduction au métabolisme 165
perd de l’énergie libre (G diminue), la valeur de DG est négative. La valeur de DG nous indique que les réactions exergoniques se produisent spontanément. (Rappelezvous que le
mot spontané n’est pas synonyme d’instantané, ni même de
rapide.) La valeur de DG correspond à la quantité maximale de
travail que la réaction peut produire*. Plus la perte d’énergie
libre est forte, plus la quantité de travail possible est élevée.
Prenons comme exemple la respiration cellulaire :
C 6 H 12 O 6 1 6 O 2 → 6 CO 2 1 6 H 2 O
DG 5 22 870 kJ/mol
Remarquez d’abord la valeur négative de DG dans cette
réaction où, pour chaque mole de glucose (180 g) décomposée par la respiration dans des conditions dites « normales »
(1 mole de chaque réactif et de chaque produit, 25 °C, pH
7), 2 870 kJ d’énergie sont libérés pour produire du travail.
Comme l’énergie se conserve et que les produits de la respiration (6 CO 2 1 6 H 2 O) ont 2 870 kJ d’énergie libre de moins
que les réactifs (C 6 H 12 O 6 1 6 O 2 ), nous savons que la différence d’énergie libre a servi à produire du travail, qu’elle a
participé à une autre réaction**.
La réaction endergonique, elle, absorbe l’énergie libre
de son environnement (figure 8.6b). Étant donné qu’elle
emmagasine plus d’énergie libre qu’elle n’en libère, DG est
positif. Elle n’est pas spontanée et la valeur de DG correspond
à la quantité minimale d’énergie requise par la réaction. Si
elle est exergonique dans un sens, la réaction chimique est
obligatoirement endergonique dans le sens inverse. Une réaction réversible ne peut libérer de l’énergie dans les deux directions. Par exemple, si DG 5 22 870 kJ/mol dans le cas de la
respiration cellulaire, qui convertit le glucose en dioxyde de
carbone et en eau, alors le processus inverse, c’estàdire la
conversion du dioxyde de carbone et de l’eau en glucose,
doit être fortement endergonique : DG 5 12 870 kJ/mol. Une
réaction de ce genre n’aurait jamais lieu spontanément
(autrement dit sans apport d’énergie).
Comment, alors, les plantes produisentelles le glucose dont
les organismes ont besoin pour vivre ? L’énergie nécessaire
pour produire du glucose (2 870 kJ/mol pour 1 mole de glucose) leur provient de l’environnement ; elles captent l’énergie lumineuse qu’elles convertissent en énergie chimique.
Ensuite, en une longue série d’étapes exergoniques, les plantes
dépensent graduellement cette énergie chimique pour assembler des molécules de glucose.
Équilibre et métabolisme
Les réactions qui se produisent dans un système isolé finissent
par atteindre l’équilibre et sont alors incapables de produire
* On emploie ici le mot maximale pour qualifier la quantité de travail, parce
qu’une partie de l’énergie libre est libérée sous forme de chaleur et ne peut
effectuer aucun travail. Donc, DG représente une limite supérieure théorique
pour l’énergie disponible.
** Il importe de comprendre que le bris des liaisons ne libère pas nécessairement de
l’énergie ; au contraire, comme nous le verrons plus loin, il en exige. L’expression
« l’énergie stockée dans les liaisons » est un raccourci : il s’agit en fait de l’énergie
potentielle qui peut être libérée lorsque de nouvelles liaisons se forment après le bris
des liaisons, et cela à condition que l’énergie libre des produits soit moins élevée que
celle des réactifs. (La dernière partie du texte en italique mérite d’être relue au
besoin, car elle contient des principes essentiels à la bonne compréhension
des notions présentées dans ce chapitre.)
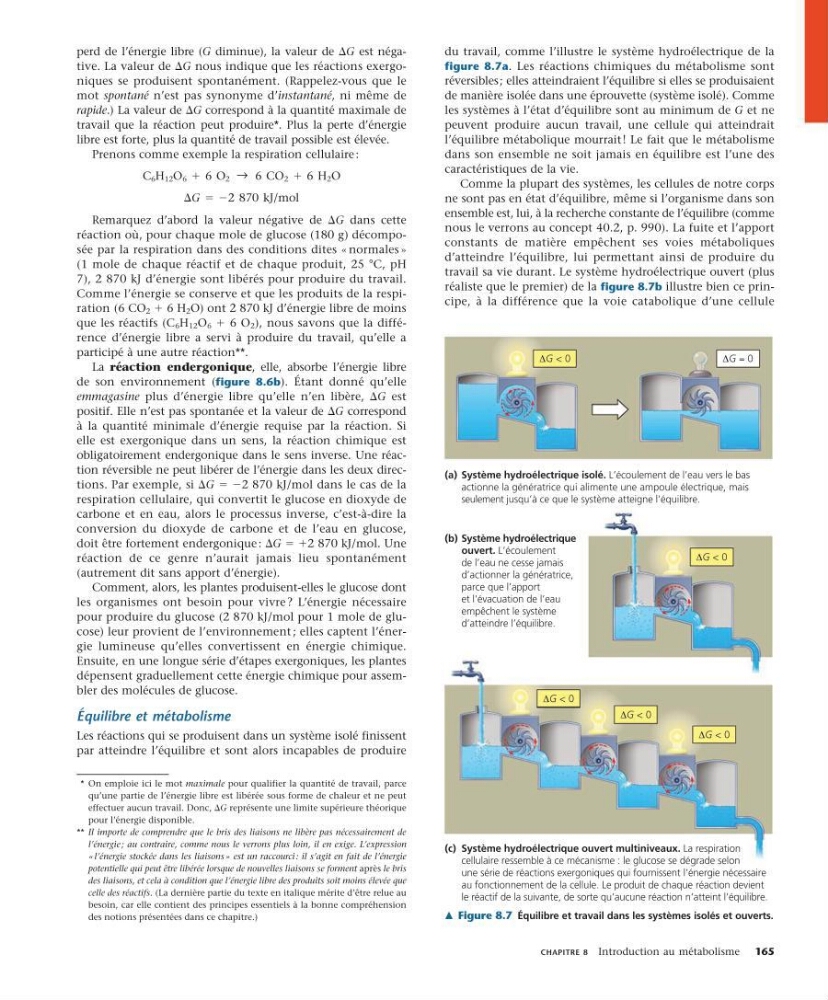
du travail, comme l’illustre le système hydroélectrique de la
figure 8.7a. Les réactions chimiques du métabolisme sont
réversibles ; elles atteindraient l’équilibre si elles se produisaient
de manière isolée dans une éprouvette (système isolé). Comme
les systèmes à l’état d’équilibre sont au minimum de G et ne
peuvent produire aucun travail, une cellule qui atteindrait
l’équilibre métabolique mourrait ! Le fait que le métabolisme
dans son ensemble ne soit jamais en équilibre est l’une des
caractéristiques de la vie.
Comme la plupart des systèmes, les cellules de notre corps
ne sont pas en état d’équilibre, même si l’organisme dans son
ensemble est, lui, à la recherche constante de l’équilibre (comme
nous le verrons au concept 40.2, p. 990). La fuite et l’apport
constants de matière empêchent ses voies métabo liques
d’atteindre l’équilibre, lui permettant ainsi de produire du
travail sa vie durant. Le système hydroélectrique ouvert (plus
réaliste que le premier) de la figure 8.7b illustre bien ce principe, à la différence que la voie catabolique d’une cellule
m Figure 8.7 Équilibre et travail dans les systèmes isolés et ouverts.
6G < 0
6G < 0
6G < 0
6G < 0
6G < 0
6G 0
(a) Système hydroélectrique isolé. L’écoulement de l’eau vers le bas
actionne la génératrice qui alimente une ampoule électrique, mais
seulement jusqu’à ce que le système atteigne l’équilibre.
(b) Système hydroélectrique
ouvert. L’écoulement
de l’eau ne cesse jamais
d’actionner la génératrice,
parce que l’apport
et l'évacuation de l’eau
empêchent le système
d’atteindre l’équilibre.
(c) Système hydroélectrique ouvert multiniveaux. La respiration
cellulaire ressemble à ce mécanisme : le glucose se dégrade selon
une série de réactions exergoniques qui fournissent l’énergie nécessaire
au fonctionnement de la cellule. Le produit de chaque réaction devient
le réactif de la suivante, de sorte qu’aucune réaction n’atteint l’équilibre.