

90
9. Étamine et pollen
La cellule pariétale est à l’origine du tapis (assise cellulaire interne à activité sécrétrice intense, nourricière des
microspores), des assises transitoires qui dégénèrent rapidement et de la future assise mécanique. Cette dernière
édifie sur ses parois des dépôts lignifiés discontinus qui provoqueront la déhiscence de l’anthère mûre : la paroi
cellulosique se dessèche et se rétracte alors que la région lignifiée résiste. Cette distorsion provoque l’ouverture de
l’anthère le long des régions de moindre résistance (fente de déhiscence).
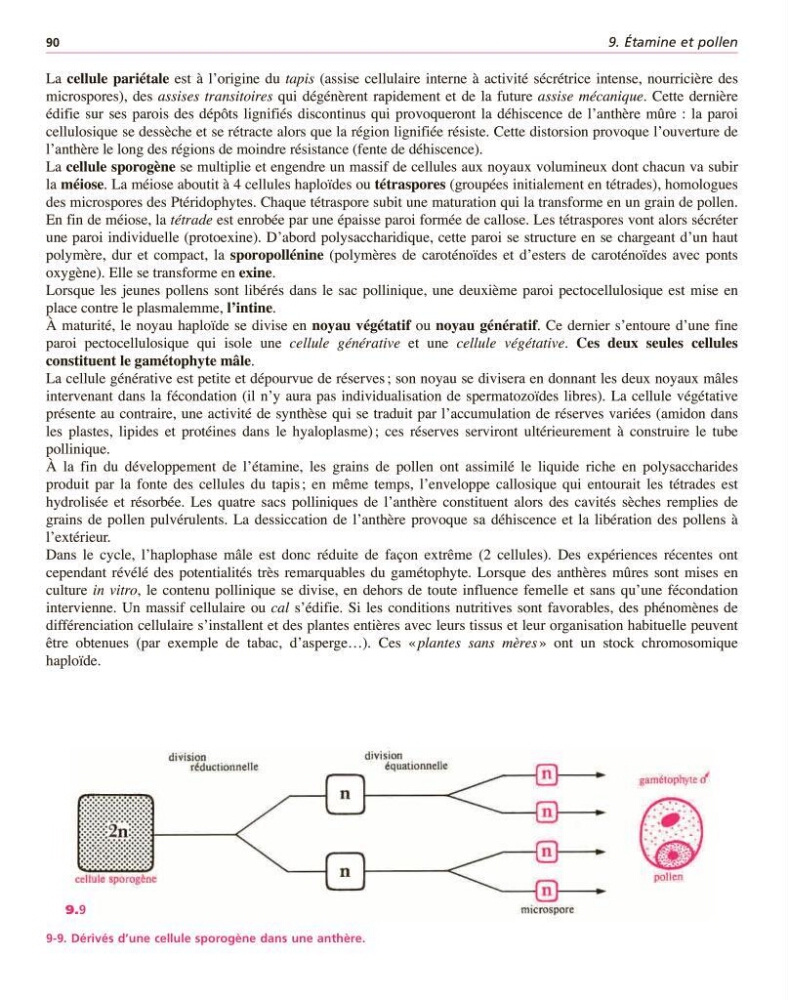
La cellule sporogène se multiplie et engendre un massif de cellules aux noyaux volumineux dont chacun va subir
la méiose. La méiose aboutit à 4 cellules haploïdes ou tétraspores (groupées initialement en tétrades), homologues
des microspores des Ptéridophytes. Chaque tétraspore subit une maturation qui la transforme en un grain de pollen.
En fin de méiose, la tétrade est enrobée par une épaisse paroi formée de callose. Les tétraspores vont alors sécréter
une paroi individuelle (protoexine). D’abord polysaccharidique, cette paroi se structure en se chargeant d’un haut
polymère, dur et compact, la sporopollénine (polymères de caroténoïdes et d’esters de caroténoïdes avec ponts
oxygène). Elle se transforme en exine.
Lorsque les jeunes pollens sont libérés dans le sac pollinique, une deuxième paroi pectocellulosique est mise en
place contre le plasmalemme, l’intine.
À maturité, le noyau haploïde se divise en noyau végétatif ou noyau génératif. Ce dernier s’entoure d’une fine
paroi pectocellulosique qui isole une cellule générative et une cellule végétative. Ces deux seules cellules
constituent le gamétophyte mâle.
La cellule générative est petite et dépourvue de réserves ; son noyau se divisera en donnant les deux noyaux mâles
intervenant dans la fécondation (il n’y aura pas individualisation de spermatozoïdes libres). La cellule végétative
présente au contraire, une activité de synthèse qui se traduit par l’accumulation de réserves variées (amidon dans
les plastes, lipides et protéines dans le hyaloplasme) ; ces réserves serviront ultérieurement à construire le tube
pollinique.
À la fin du développement de l’étamine, les grains de pollen ont assimilé le liquide riche en polysaccharides
produit par la fonte des cellules du tapis ; en même temps, l’enveloppe callosique qui entourait les tétrades est
hydrolisée et résorbée. Les quatre sacs polliniques de l’anthère constituent alors des cavités sèches remplies de
grains de pollen pulvérulents. La dessiccation de l’anthère provoque sa déhiscence et la libération des pollens à
l’extérieur.
Dans le cycle, l’haplophase mâle est donc réduite de façon extrême (2 cellules). Des expériences récentes ont
cependant révélé des potentialités très remarquables du gamétophyte. Lorsque des anthères mûres sont mises en
culture in vitro, le contenu pollinique se divise, en dehors de toute influence femelle et sans qu’une fécondation
intervienne. Un massif cellulaire ou cal s’édifie. Si les conditions nutritives sont favorables, des phénomènes de
différenciation cellulaire s’installent et des plantes entières avec leurs tissus et leur organisation habituelle peuvent
être obtenues (par exemple de tabac, d’asperge…). Ces « plantes sans mères » ont un stock chromosomique
haploïde.
9-9. Dérivés d’une cellule sporogène dans une anthère.
9.9