

38
4. Différenciation dans la feuille et la tige
L’approvisionnement et l’évacuation des métabolites sont assurés par les nervures de la feuille. Les plus fines sont
abondamment ramifiées et anastomosées dans le limbe. Elles constituent les mailles d’un réseau dont
l’établissement est discontinu. Dans les jeunes limbes, il est aisé de voir se différencier les premières trachéides à
partir de points épars (points de primo-différenciation) puis, de nouvelles trachéides se formant, le réseau se ferme
de proche en proche. Les Monocotylédones ont des nervures parallèles d’importance assez semblable. Dans les
feuilles de Dicotylédones, au contraire, les faisceaux confluent vers le bas en nervures de taille croissante. Les plus
volumineuses et particulièrement la nervure médiane ont des tissus de soutien – collenchyme et sclérenchyme –
associés aux tissus conducteurs. Le pétiole, dépourvu de limbe, a une structure histologique comparable à celle
d’une tige, si ce n’est sa symétrie bilatérale.
L’anatomie du raccord avec la tige (structure nodale) est en général constante pour un espèce et ordinairement pour
une même famille. Les faisceaux provenant de la feuille peuvent être suivis sur une certaine hauteur dans la tige
(trace foliaire). Ils se ramifient et, après un trajet défini, s’associent et se fusionnent avec les faisceaux venu
d’autres feuilles.
Chez les Dicotylédones, ces faisceaux se répartissent selon un cercle autour de la moelle en formant une couronne
vasculaire. L’intégration des faisceaux d’une feuille implique une interruption locale de la couronne vasculaire
appelée brèche foliaire. Chez les Monocotylédones, les segments foliaires sont emboîtés et les faisceaux ont une
course telle qu’ils apparaissent, en coupe, dispersés dans l’ensemble de la tige. De plus, dépourvus de formations
secondaires, les faisceaux conducteurs des Monocotylédones ont un aspect caractéristique dû à l’apparition d’une
phase supplémentaire de l’évolution vasculaire (4
e phase ou phase concentrique) au cours de laquelle les vaisseaux
entourent les cordons de phloème.
De même que sa taille, la durée de la vie de la feuille est limitée. Après une période variable de végétation, les
cellules foliaires entrent en sénescence puis dégénèrent et l’abscission se produit à la base du pétiole. Alors, seule
persistera la tige qui, au départ, était apparue comme une dépendance foliaire.
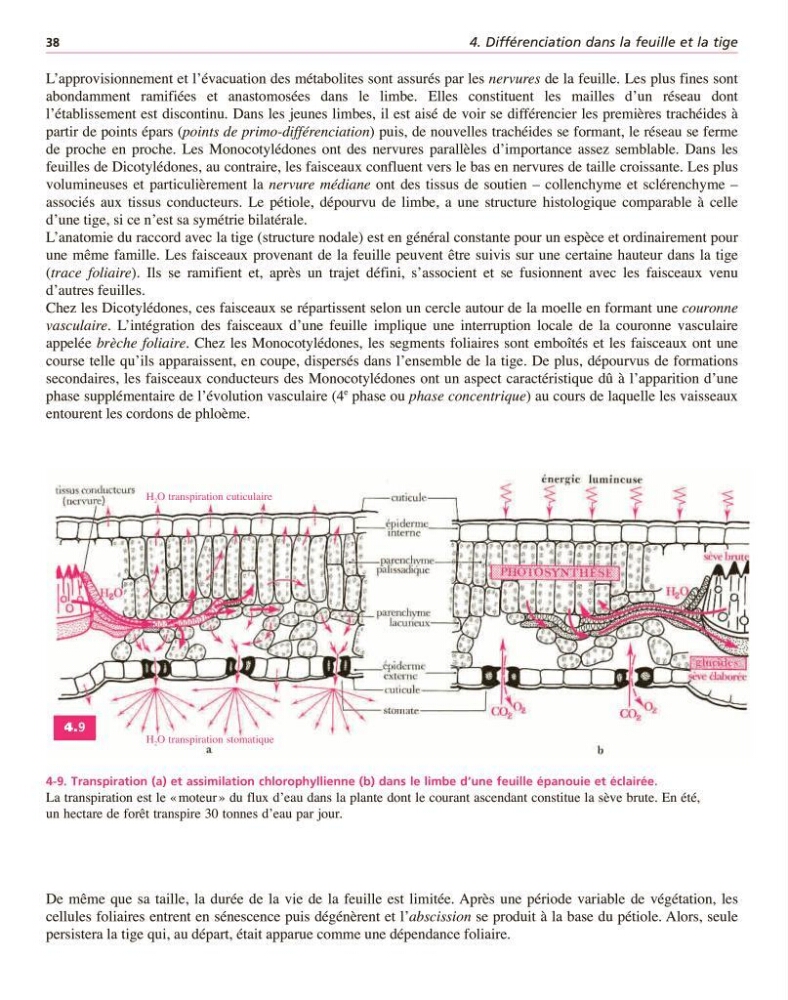
4-9. Transpiration (a) et assimilation chlorophyllienne (b) dans le limbe d’une feuille épanouie et éclairée.
La transpiration est le « moteur » du flux d’eau dans la plante dont le courant ascendant constitue la sève brute. En été,
un hectare de forêt transpire 30 tonnes d’eau par jour.
4.9
H 2 O transpiration cuticulaire
H 2 O transpiration stomatique