

134
5. Vers les plantes à fleurs et à graines Préphanérogames ou Préspermaphytes
Arbres évolutifs et biodiversité
Darwin avait prévu que les « classifications deviendraient des généalogies ». Depuis Haekel au siècle dernier,
l’enchaînement des êtres organisés est présenté sous forme d’un arbre, l’arbre phylétique , dont les branches et
les rameaux indiquent l’apparition de nouvelles lignées (d’où la terminologie « embranchement » et « groupe
souche »). Les dimensions horizontales de l’arbre indiquent l’étendue de la diversité ; la dimension verticale
suggère une progression continue du simple vers le complexe. L’arbre traditionnel se déploie en s’ouvrant toujours
davantage, en présentant un « cône de diversité croissante ». Cette iconographie familière risque de persuader implicitement d’un élan continu vers le perfectionné. Les évolutionnistes insistent en réalité sur la multiplicité possible
des formes buissonnantes et sur la nécessité d’avoir présent à l’esprit que cet « arbre à remonter le temps » a
subi un élagage considérable. La décimation (= un sur dix) intervenue au cours du temps fait que la biodiversité
globale (nombre d’espèces en coexistence) change avec le temps mais n’augmente pas nécessairement. (De façon
plus précise, ce concept doit être considéré à plusieurs niveaux et la définition utilisée par les organismes internationaux chargés de l’étude des changements de l’environnement comme l’Unesco est : la biodiversité est l’ensemble
des gènes, des espèces et des écosystèmes d’une région ).
Un autre point de controverse porte sur la notion assez subjective (et anthropocentrique) de « progrès continu » et
d’ordre évolutif. Elle prend en compte de façon trop exclusive la notion de compétition et de « survivance du plus
apte ». La tendance actuelle est de donner une part plus grande au hasard et à l’imprédictibilité dans l’extinction
des espèces en prenant en compte les causes non biologiques (événement climatique, volcanique, etc.), en particulier
aux périodes où l’élimination s’est produite massivement (fin du Permien – 80 % des espèces semblent avoir
disparu –, fin du Crétacé) (cf. p. 125 et p. 131).
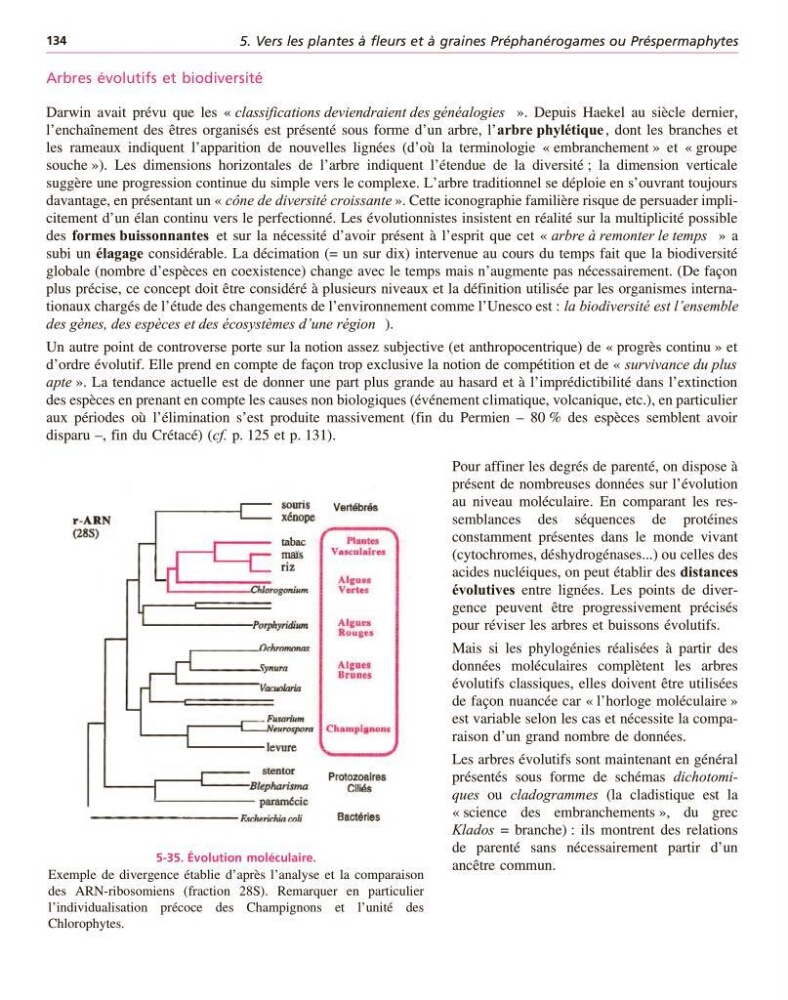
Pour affiner les degrés de parenté, on dispose à
présent de nombreuses données sur l’évolution
au niveau moléculaire. En comparant les ressemblances des séquences de protéines
constamment présentes dans le monde vivant
(cytochromes, déshydrogénases...) ou celles des
acides nucléiques, on peut établir des distances
évolutives entre lignées. Les points de divergence peuvent être progressivement précisés
pour réviser les arbres et buissons évolutifs.
Mais si les phylogénies réalisées à partir des
données moléculaires complètent les arbres
évolutifs classiques, elles doivent être utilisées
de façon nuancée car « l’horloge moléculaire »
est variable selon les cas et nécessite la comparaison d’un grand nombre de données.
Les arbres évolutifs sont maintenant en général
présentés sous forme de schémas dichotomiques ou cladogrammes (la cladistique est la
« science des embranchements », du grec
Klados = branche) : ils montrent des relations
de parenté sans nécessairement partir d’un
ancêtre commun.
5-35. Évolution moléculaire.
Exemple de divergence établie d’après l’analyse et la comparaison
des ARN-ribosomiens (fraction 28S). Remarquer en particulier
l’individualisation précoce des Champignons et l’unité des
Chlorophytes.