

ment de l’effectif correspond au temps de génération, la population s’accroissant de façon exponentielle (en marches d’escalier, si celle-ci est
synchrone, ou régulièrement, si elle ne l’est pas).
Plusieurs méthodes permettent d’obtenir des
populations synchrones. Tout d’abord, comme les
cellules augmentent de taille au cours du cycle, on
peut imaginer les séparer grâce à des techniques
de filtration ou de centrifugation : les plus petites
d’entre elles viennent en effet de se diviser tandis
que les plus grosses vont entrer en division. Cette
méthode rudimentaire reste d’une efficacité limitée. Dans le cas des cellules animales en culture,
on exploite le fait que celles qui entrent en division
s’arrondissent et tendent à se détacher de leur support, à la suite de la modification de leur cytosquelette ; elles sont facilement séparables de celles qui
restent adhérentes au substrat par simple agitation
des boîtes, et récupérables par décantation. La
méthode décrite sous le nom de cytométrie en
flux est également utilisable sur des suspensions
cellulaires ; en effet, associée à un trieur de cellules, elle permet d’obtenir des populations considérables de cellules viables relativement
synchrones (voir chapitre 3).
La technique la plus élégante, mais applicable à
un nombre limité de systèmes biologiques, est
l’utilisation de mutants conditionnels du cycle
(voir chapitre 3). Dans certaines conditions de température, dites restrictives, ces souches thermosensibles arrêtent leur développement à une phase
précise du cycle et toutes les cellules se synchronisent les unes après les autres au même stade. Si on
les remet dans des conditions où la mutation ne
s’exprime pas, toutes les cellules redémarrent évidemment en même temps, et du même point ; cette
méthode a été particulièrement développée chez la
levure, dont la génétique est aisée (voir plus loin).
La durée des phases G1, S et G2 est aisément
mesurable dans ces populations, après prélèvement d’échantillons tout au long du cycle et dosage
de la quantité d’ADN par cellule. Ce dernier est
fait après extraction chimique, ou directement au
niveau de chaque noyau cellulaire : on peut, en
effet, colorer l’ADN, sur coupes ou écrasements,
grâce à une méthode quantitative de type Feulgen
(voir chapitre 8) et le doser par une technique
alliant la cytologie et la spectrophotométrie : la
cytophotométrie. Une dernière approche, plus
complexe à mettre en œuvre, est réalisable : des
échantillons de cellules sont incubés dans de la
thymidine
3
H pendant un temps bref ( pulse), fixés
immédiatement, puis traités pour l’autoradiographie. Seules les cellules en phase S (incorporant la
thymidine radioactive dans leur ADN) fourniront
une image autoradiographique positive, c’est-àdire présentant des grains d’argent au niveau du
398 B IOLOGIE CELLULAIRE
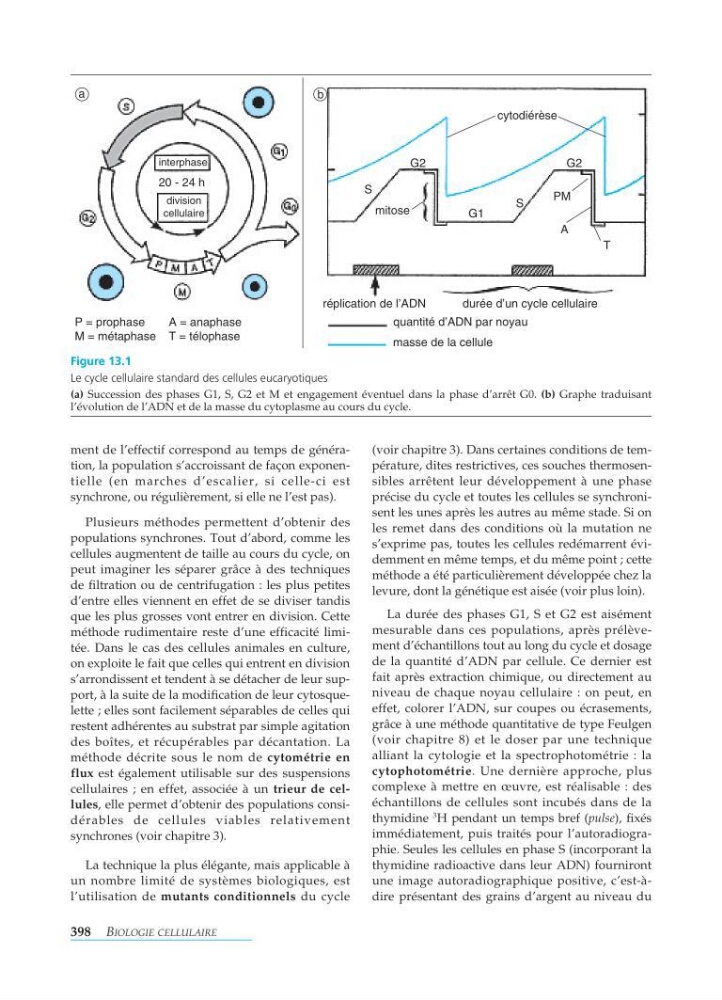
Figure 13.1
Le cycle cellulaire standard des cellules eucaryotiques
(a) Succession des phases G1, S, G2 et M et engagement éventuel dans la phase d’arrêt G0. (b) Graphe traduisant
l’évolution de l’ADN et de la masse du cytoplasme au cours du cycle.
interphase
20 - 24 h
cytodiérèse
mitose
réplication de l’ADN
quantité d’ADN par noyau
masse de la cellule
durée d’un cycle cellulaire
G2
G2
S
S
T
A
PM
G1
division
cellulaire
P = prophase
A = anaphase
M = métaphase T = télophase
a
b