

372 B IOLOGIE CELLULAIRE
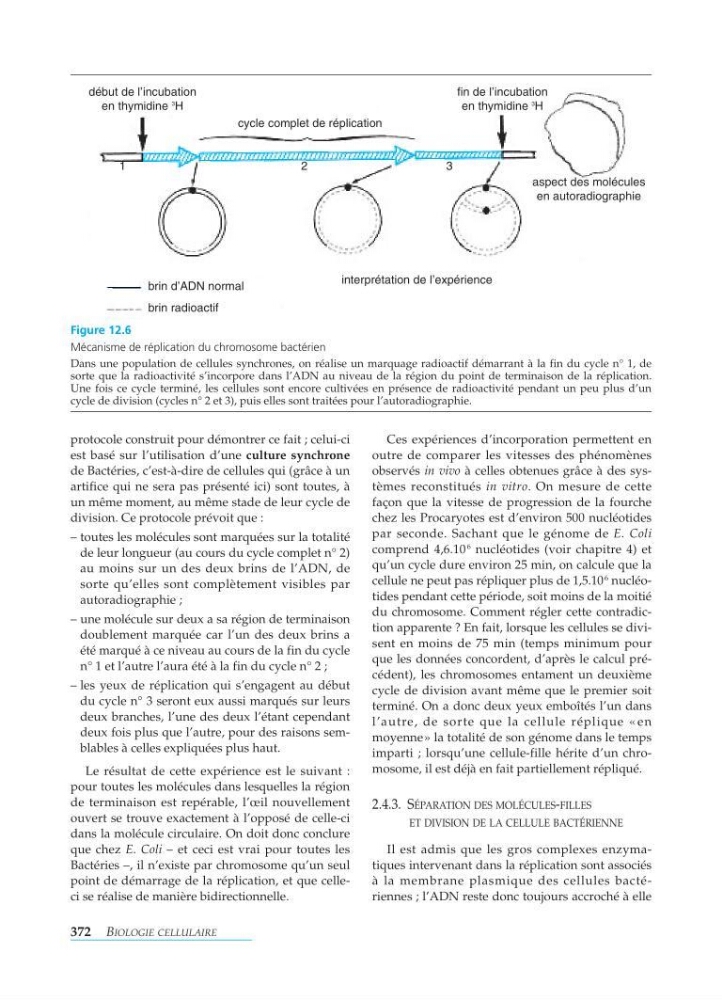
protocole construit pour démontrer ce fait ; celui-ci
est basé sur l’utilisation d’une culture synchrone
de Bactéries, c’est-à-dire de cellules qui (grâce à un
artifice qui ne sera pas présenté ici) sont toutes, à
un même moment, au même stade de leur cycle de
division. Ce protocole prévoit que :
–toutes les molécules sont marquées sur la totalité
de leur longueur (au cours du cycle complet n° 2)
au moins sur un des deux brins de l’ADN, de
sorte qu’elles sont complètement visibles par
autoradiographie ;
–une molécule sur deux a sa région de terminaison
doublement marquée car l’un des deux brins a
été marqué à ce niveau au cours de la fin du cycle
n° 1 et l’autre l’aura été à la fin du cycle n° 2;
–les yeux de réplication qui s’engagent au début
du cycle n° 3 seront eux aussi marqués sur leurs
deux branches, l’une des deux l’étant cependant
deux fois plus que l’autre, pour des raisons semblables à celles expliquées plus haut.
Le résultat de cette expérience est le suivant :
pour toutes les molécules dans lesquelles la région
de terminaison est repérable, l’œil nouvellement
ouvert se trouve exactement à l’opposé de celle-ci
dans la molécule circulaire. On doit donc conclure
que chez E. Coli – et ceci est vrai pour toutes les
Bactéries –, il n’existe par chromosome qu’un seul
point de démarrage de la réplication, et que celleci se réalise de manière bidirectionnelle.
Ces expériences d’incorporation permettent en
outre de comparer les vitesses des phénomènes
observés in vivo à celles obtenues grâce à des systèmes reconstitués in vitro. On mesure de cette
façon que la vitesse de progression de la fourche
chez les Procaryotes est d’environ 500 nucléotides
par seconde. Sachant que le génome de E. Coli
comprend 4,6.10
6
nucléotides (voir chapitre 4) et
qu’un cycle dure environ 25 min, on calcule que la
cellule ne peut pas répliquer plus de 1,5.10
6
nucléotides pendant cette période, soit moins de la moitié
du chromosome. Comment régler cette contradiction apparente ? En fait, lorsque les cellules se divisent en moins de 75 min (temps minimum pour
que les données concordent, d’après le calcul précédent), les chromosomes entament un deuxième
cycle de division avant même que le premier soit
terminé. On a donc deux yeux emboîtés l’un dans
l’autre, de sorte que la cellule réplique «en
moyenne» la totalité de son génome dans le temps
imparti ; lorsqu’une cellule-fille hérite d’un chromosome, il est déjà en fait partiellement répliqué.
2.4.3. S ÉPARATION DES MOLÉCULES- FILLES
ET DIVISION DE LA CELLULE BACTÉRIENNE
Il est admis que les gros complexes enzymatiques intervenant dans la réplication sont associés
à la membrane plasmique des cellules bactériennes ; l’ADN reste donc toujours accroché à elle
début de l’incubation
en thymidine
3
H
fin de l’incubation
en thymidine
3
H
aspect des molécules
en autoradiographie
interprétation de l’expérience
12
3
cycle complet de réplication
brin d’ADN normal
brin radioactif
Figure 12.6
Mécanisme de réplication du chromosome bactérien
Dans une population de cellules synchrones, on réalise un marquage radioactif démarrant à la fin du cycle n° 1, de
sorte que la radioactivité s’incorpore dans l’ADN au niveau de la région du point de terminaison de la réplication.
Une fois ce cycle terminé, les cellules sont encore cultivées en présence de radioactivité pendant un peu plus d’un
cycle de division (cycles n° 2 et 3), puis elles sont traitées pour l’autoradiographie.