

282 B IOLOGIE CELLULAIRE
5.3.3. I MPORTATION DANS LES AUTRES
COMPARTIMENTS
Il s’agit essentiellement de l’espace intermembranaire mitochondrial et des deux faces membranaires tournées vers lui, d’une part, et de la
membrane externe ; les cavités intrathylakoïdiennes
des plastes sont équivalentes, du point de vue du
mécanisme mis en jeu, à cet espace. L’adressage
vers ce compartiment se réalise grâce à une
séquence-signal double, fonctionnant en deux
temps : la partie N-terminale de la chaîne polypeptidique a la même organisation que celle décrite
plus haut, et son fonctionnement est identique au
départ. Dans le cas des mitochondries, les événements qui suivent font encore l’objet de controverses : 1) certains auteurs pensent que la protéine
gagne la matrice, où cette séquence est clivée, ce
qui dévoile une deuxième séquence lui faisant
suite ; celle-ci, très hydrophobe, dirigerait à son
tour la protéine vers l’espace intermembranaire,
en permettant le franchissement de la membrane
interne ; 2) d’autres auteurs considèrent que cette
deuxième séquence permet simplement un
ancrage dans la membrane interne, ce qui, par glissement latéral du tunnel le plus interne, amènerait
directement la protéine dans l’espace intermembranaire, sans qu’elle passe par la matrice (voir
figure 9.24). Une fois dans cette cavité, les protéines
deviennent libres ou participent à des complexes
membranaires (après clivage de la séquence-signal
n° 2), ou bien elles restent membranaires intrinsèques (en l’absence de clivage). Chez les chloroplastes, le premier modèle proposé est effectif pour
l’importation de protéines spécifiques dans les
cavités des thylakoïdes, telles que la plastocyanine.
D’autres mécanismes originaux d’adressage
vers ce compartiment ont été mis en évidence, qui
ne peuvent être développés ici. Enfin, certaines
protéines qui ne présentent apparemment pas de
signalisation particulière, passent directement du
hyaloplasme dans la membrane externe des organites ; c’est le cas, par exemple, des récepteurs
membranaires signalés plus haut. Ces molécules
n’empruntent pas les sites de contact et toute la
machinerie décrite jusqu’à présent ; les détails de
ces phénomènes restent à préciser.
❊
❊
❊
❊
❊ ❊
❊ ❊
❊
❊
❊
❊
❊
protéine matricielle
définitive
clivage de la
séquence-signal
N
N
N
membrane interne
protéine chaperon
mitochondriale
C
C
C
récepteur de
la séquencesignal
protéines-tunnel
membrane
externe
séquence
signal
protéine à importer
protéine chaperon
hyaloplasmique
hyaloplasme
matrice
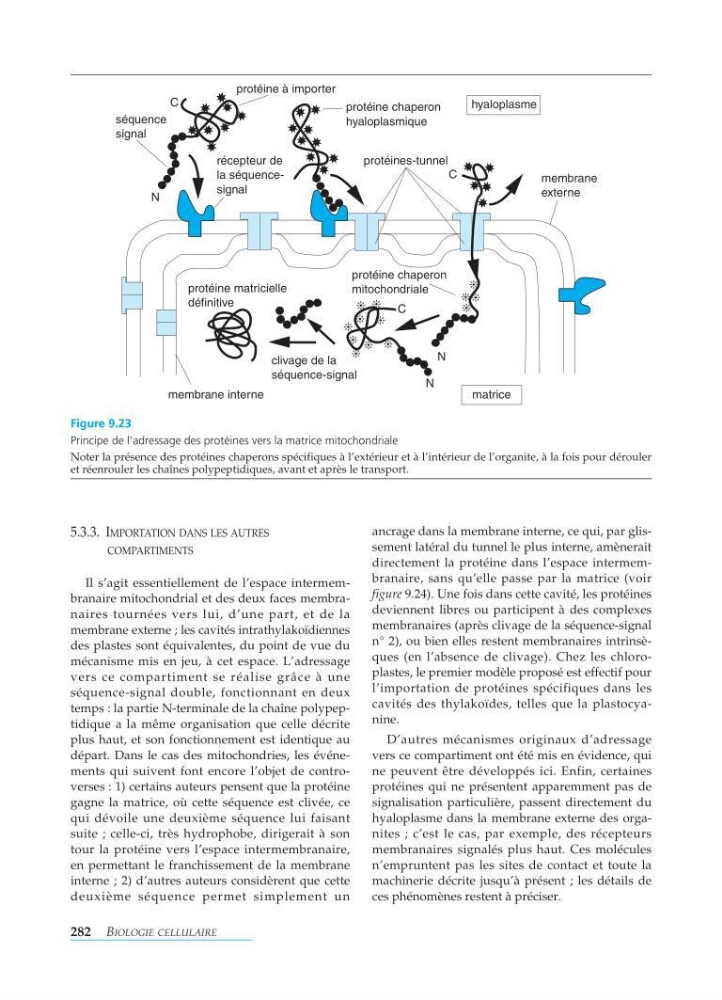
Figure 9.23
Principe de l’adressage des protéinesvers la matrice mitochondriale
Noter la présence des protéines chaperons spécifiques à l’extérieur et à l’intérieur de l’organite, à la fois pour dérouler
et réenrouler les chaînes polypeptidiques, avant et après le transport.