

8. E XPRESSION DES G È NES NUCLÉAIRES CHEZ LES EUCARYOTES.A SPECTS CELLULAIRES ET MOLÉCULAIRES 239
© Dunod – La photocopie non autorisée est un délit.
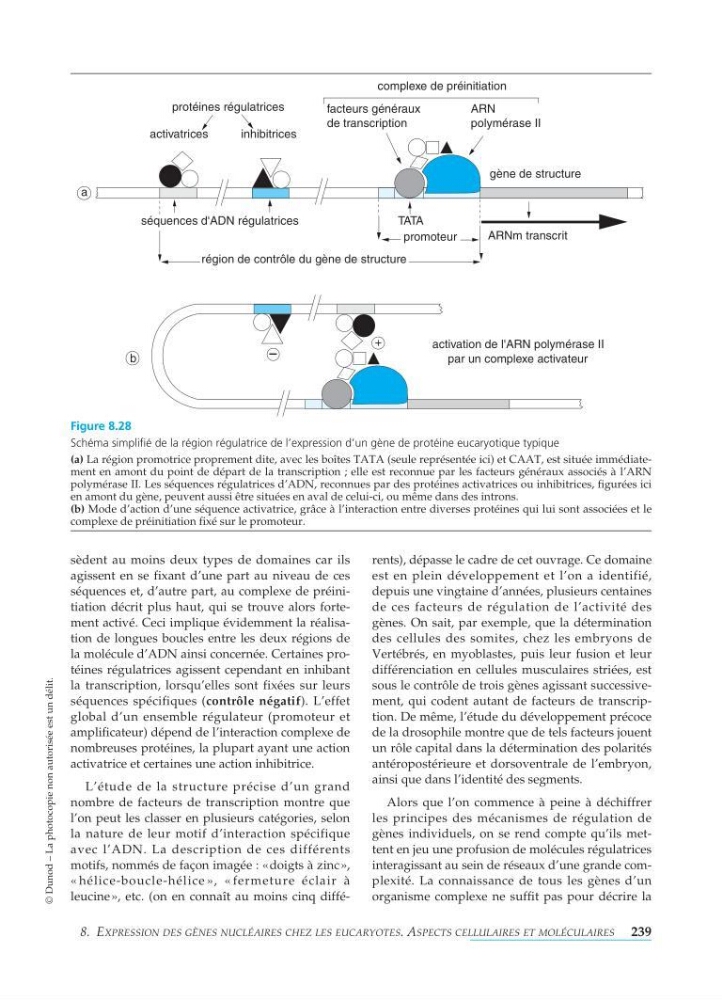
sèdent au moins deux types de domaines car ils
agissent en se fixant d’une part au niveau de ces
séquences et, d’autre part, au complexe de préinitiation décrit plus haut, qui se trouve alors fortement activé. Ceci implique évidemment la réalisation de longues boucles entre les deux régions de
la molécule d’ADN ainsi concernée. Certaines protéines régulatrices agissent cependant en inhibant
la transcription, lorsqu’elles sont fixées sur leurs
séquences spécifiques ( contrôle négatif). L’effet
global d’un ensemble régulateur (promoteur et
amplificateur) dépend de l’interaction complexe de
nombreuses protéines, la plupart ayant une action
activatrice et certaines une action inhibitrice.
L’étude de la structure précise d’un grand
nombre de facteurs de transcription montre que
l’on peut les classer en plusieurs catégories, selon
la nature de leur motif d’interaction spécifique
avec l’ADN. La description de ces différents
motifs, nommés de façon imagée : «doigts à zinc»,
«hélice-boucle-hélice», «fermeture éclair à
leucine », etc. (on en connaît au moins cinq différents), dépasse le cadre de cet ouvrage. Ce domaine
est en plein développement et l’on a identifié,
depuis une vingtaine d’années, plusieurs centaines
de ces facteurs de régulation de l’activité des
gènes. On sait, par exemple, que la détermination
des cellules des somites, chez les embryons de
Vertébrés, en myoblastes, puis leur fusion et leur
différenciation en cellules musculaires striées, est
sous le contrôle de trois gènes agissant successivement, qui codent autant de facteurs de transcription. De même, l’étude du développement précoce
de la drosophile montre que de tels facteurs jouent
un rôle capital dans la détermination des polarités
antéropostérieure et dorsoventrale de l’embryon,
ainsi que dans l’identité des segments.
Alors que l’on commence à peine à déchiffrer
les principes des mécanismes de régulation de
gènes individuels, on se rend compte qu’ils mettent en jeu une profusion de molécules régulatrices
interagissant au sein de réseaux d’une grande complexité. La connaissance de tous les gènes d’un
organisme complexe ne suffit pas pour décrire la
séquences d'ADN régulatrices
protéines régulatrices
activatrices
inhibitrices
complexe de préinitiation
facteurs généraux
de transcription
ARN
polymérase II
gène de structure
ARNm transcrit
région de contrôle du gène de structure
promoteur
TATA
+
activation de l'ARN polymérase II
par un complexe activateur
a
b
Figure 8.28
Schéma simplifié de la région régulatrice de l’expression d’un gène de protéine eucaryotique typique
(a) La région promotrice proprement dite, avec les boîtes TATA (seule représentée ici) et CAAT, est située immédiatement en amont du point de départ de la transcription ; elle est reconnue par les facteurs généraux associés à l’ARN
polymérase II. Les séquences régulatrices d’ADN, reconnues par des protéines activatrices ou inhibitrices, figurées ici
en amont du gène, peuvent aussi être situées en aval de celui-ci, ou même dans des introns.
(b) Mode d’action d’une séquence activatrice, grâce à l’interaction entre diverses protéines qui lui sont associées et le
complexe de préinitiation fixé sur le promoteur.