

Une deuxième donnée importante relative au
métabolisme de l’ARN a été obtenue à partir
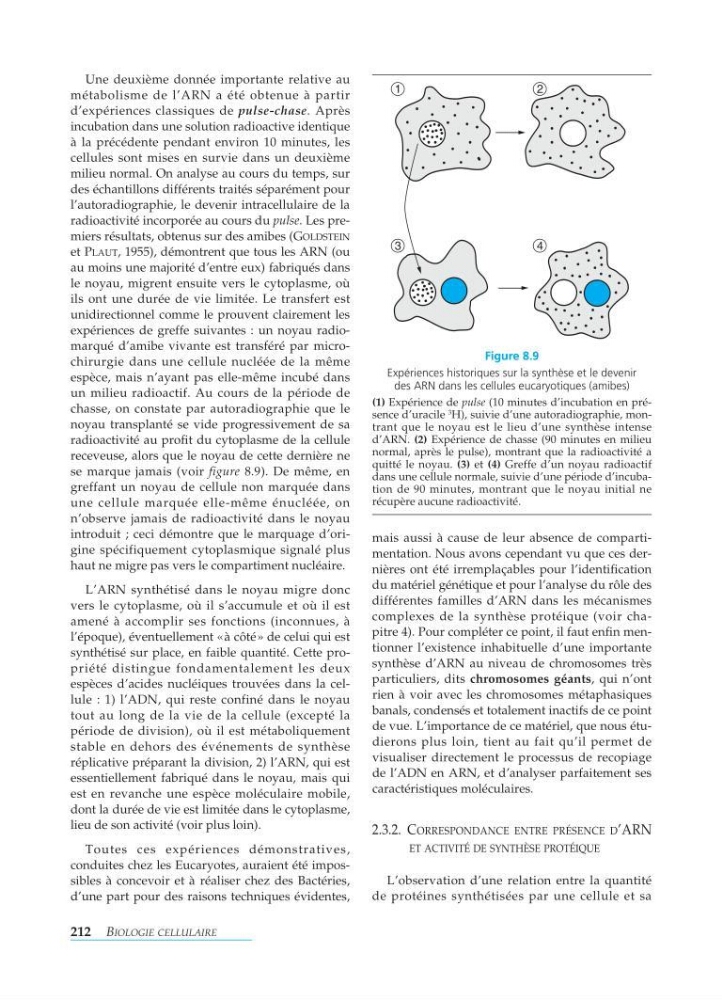
d’expériences classiques de pulse-chase. Après
incubation dans une solution radioactive identique
à la précédente pendant environ 10 minutes, les
cellules sont mises en survie dans un deuxième
milieu normal. On analyse au cours du temps, sur
des échantillons différents traités séparément pour
l’autoradiographie, le devenir intracellulaire de la
radioactivité incorporée au cours du pulse. Les premiers résultats, obtenus sur des amibes (GOLDSTEIN
et P LAUT, 1955), démontrent que tous les ARN (ou
au moins une majorité d’entre eux) fabriqués dans
le noyau, migrent ensuite vers le cytoplasme, où
ils ont une durée de vie limitée. Le transfert est
unidirectionnel comme le prouvent clairement les
expériences de greffe suivantes : un noyau radiomarqué d’amibe vivante est transféré par microchirurgie dans une cellule nucléée de la même
espèce, mais n’ayant pas elle-même incubé dans
un milieu radioactif. Au cours de la période de
chasse, on constate par autoradiographie que le
noyau transplanté se vide progressivement de sa
radioactivité au profit du cytoplasme de la cellule
receveuse, alors que le noyau de cette dernière ne
se marque jamais (voir figure 8.9). De même, en
greffant un noyau de cellule non marquée dans
une cellule marquée elle-même énucléée, on
n’observe jamais de radioactivité dans le noyau
introduit ; ceci démontre que le marquage d’origine spécifiquement cytoplasmique signalé plus
haut ne migre pas vers le compartiment nucléaire.
L’ARN synthétisé dans le noyau migre donc
vers le cytoplasme, où il s’accumule et où il est
amené à accomplir ses fonctions (inconnues, à
l’époque), éventuellement «à côté » de celui qui est
synthétisé sur place, en faible quantité. Cette propriété distingue fondamentalement les deux
espèces d’acides nucléiques trouvées dans la cellule : 1) l’ADN, qui reste confiné dans le noyau
tout au long de la vie de la cellule (excepté la
période de division), où il est métaboliquement
stable en dehors des événements de synthèse
réplicative préparant la division, 2) l’ARN, qui est
essentiellement fabriqué dans le noyau, mais qui
est en revanche une espèce moléculaire mobile,
dont la durée de vie est limitée dans le cytoplasme,
lieu de son activité (voir plus loin).
Toutes ces expériences démonstratives,
conduites chez les Eucaryotes, auraient été impossibles à concevoir et à réaliser chez des Bactéries,
d’une part pour des raisons techniques évidentes,
mais aussi à cause de leur absence de compartimentation. Nous avons cependant vu que ces dernières ont été irremplaçables pour l’identification
du matériel génétique et pour l’analyse du rôle des
différentes familles d’ARN dans les mécanismes
complexes de la synthèse protéique (voir chapitre 4). Pour compléter ce point, il faut enfin mentionner l’existence inhabituelle d’une importante
synthèse d’ARN au niveau de chromosomes très
particuliers, dits chromosomes géants, qui n’ont
rien à voir avec les chromosomes métaphasiques
banals, condensés et totalement inactifs de ce point
de vue. L’importance de ce matériel, que nous étudierons plus loin, tient au fait qu’il permet de
visualiser directement le processus de recopiage
de l’ADN en ARN, et d’analyser parfaitement ses
caractéristiques moléculaires.
2.3.2. C ORRESPONDANCE ENTRE PRÉSENCE D ’ARN
ET ACTIVITÉ DE SYNTHÈSE PROTÉIQUE
L’observation d’une relation entre la quantité
de protéines synthétisées par une cellule et sa
212 B IOLOGIE CELLULAIRE
Figure 8.9
Expériences historiques sur la synthèse et le devenir
des ARN dans les cellules eucaryotiques (amibes)
(1) Expérience de pulse (10 minutes d’incubation en présence d’uracile
3
H), suivie d’une autoradiographie, montrant que le noyau est le lieu d’une synthèse intense
d’ARN. (2) Expérience de chasse (90 minutes en milieu
normal, après le pulse), montrant que la radioactivité a
quitté le noyau. (3) et (4) Greffe d’un noyau radioactif
dans une cellule normale, suivie d’une période d’incubation de 90 minutes, montrant que le noyau initial ne
récupère aucune radioactivité.
1
2
3
4