

6. É CHANGES DE MATIÈ RE ENTRE CELLULE ET MILIEU EXTÉRIEUR.L ER Ô LE DE LA MEMBRANE PLASMIQUE 161
© Dunod – La photocopie non autorisée est un délit.
cette dynamique ne sont pas encore complètement
élucidés. Ce mode de formation de vésicules est
généralisable à d’autres territoires membranaires
que la membrane cytoplasmique ; nous verrons en
effet que le bourgeonnement de certaines vésicules
au niveau du réseau membranaire interne dit
«transgolgien», se déroule de la même façon,
grâce à des cages de clathrine.
Il faut enfin signaler que certaines formes
d’endocytose se déroulent sans l’intervention de la
clathrine. On peut citer le cas des cellules endothéliales (décrites plus loin), ou celui de l’endocytose
de la thyroglobuline, lors de la production de la
thyroxine par les thyréocytes (voir chapitre 7).
3.2.2. I NTERVENTION DE RÉCEPTEURS MEMBRANAIRES
AU COURS DE L ’ ENDOCYTOSE
Chaque vésicule intériorisée emporte évidemment dans sa lumière un peu du milieu extérieur à
la cellule ; de l’eau, des ions, des molécules dissoutes sont ainsi absorbés. C’est ce qui se produit
dans le cas des cellules endothéliales, qui absorbent ainsi des gouttelettes dont la composition est
représentative de leur milieu extérieur ; on parle
alors d’endocytose de phase liquide.
Cependant, l’efficacité réelle du mécanisme de
pinocytose tient à la possibilité pour la membrane
plasmique de concentrer considérablement certains composés à importer, grâce à leur adsorption
spécifique au niveau de récepteurs membranaires,
qui les prennent en charge. Il s’agit de protéines
intrinsèques possédant un domaine extracellulaire
capable de reconnaître et de fixer solidement le
produit à absorber (ligand). Une fois chargés, ces
récepteurs se rassemblent au niveau des puits
recouverts et ils sont évidemment intériorisés en
même temps que le reste de la membrane, lors de
la formation des vésicules ; on parle alors d’endocytose par l’intermédiaire de récepteurs. Ce
mécanisme est plus de 10 00 fois plus efficace que
l’endocytose simple de phase liquide, et même des
substances très diluées dans le milieu extérieur
peuvent être concentrées et ingérées en grande
quantité par les cellules. Un seul puits recouvert
peut en effet rassembler environ 10 00 récepteurs,
appartenant le plus souvent à des types différents.
Un des exemples classiques de ce mécanisme est
celui de l’importation du cholestérol par les cellules
animales. Ce constituant hydrophobe, qui entre
dans la composition des membranes cellulaires
(voir chapitre 5), est essentiellement d’origine exogène. Fabriqué en grande partie par le foie, il est
transporté dans le sang sous forme de particules
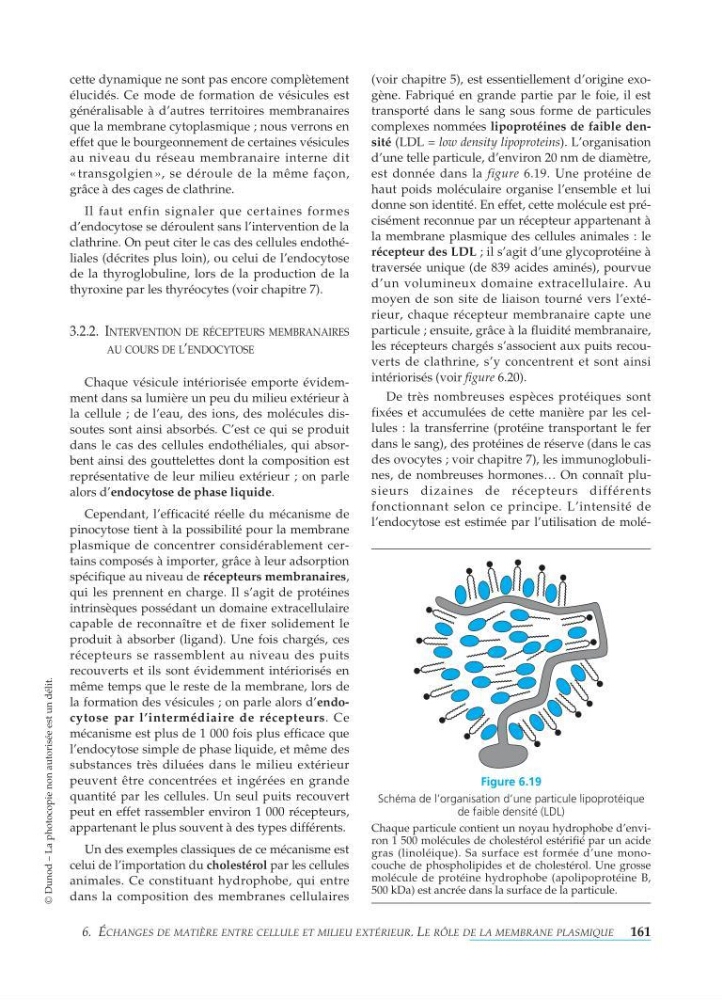
complexes nommées lipoprotéines de faible densité (LDL = low density lipoproteins ). L’organisation
d’une telle particule, d’environ 20 nm de diamètre,
est donnée dans la figure 6.19. Une protéine de
haut poids moléculaire organise l’ensemble et lui
donne son identité. En effet, cette molécule est précisément reconnue par un récepteur appartenant à
la membrane plasmique des cellules animales : le
récepteur des LDL ; il s’agit d’une glycoprotéine à
traversée unique (de 839 acides aminés), pourvue
d’un volumineux domaine extracellulaire. Au
moyen de son site de liaison tourné vers l’extérieur, chaque récepteur membranaire capte une
particule ; ensuite, grâce à la fluidité membranaire,
les récepteurs chargés s’associent aux puits recouverts de clathrine, s’y concentrent et sont ainsi
intériorisés (voir figure 6.20).
De très nombreuses espèces protéiques sont
fixées et accumulées de cette manière par les cellules:la transferrine (protéine transportant le fer
dans le sang), des protéines de réserve (dans le cas
des ovocytes ; voir chapitre 7), les immunoglobulines, de nombreuses hormones… On connaît plusieurs dizaines de récepteurs différents
fonctionnant selon ce principe. L’intensité de
l’endocytose est estimée par l’utilisation de moléFigure 6.19
Schéma de l’organisation d’une particule lipoprotéique
de faible densité (LDL)
Chaque particule contient un noyau hydrophobe d’environ 15 00 molécules de cholestérol estérifié par un acide
gras (linoléique). Sa surface est formée d’une monocouche de phospholipides et de cholestérol. Une grosse
molécule de protéine hydrophobe (apolipoprotéine B,
500 kDa) est ancrée dans la surface de la particule.