

4. F LUX DE L ’ INFORMATION GÉNÉTIQUE.S TRUCTURE ET EXPRESSION DES G È NES.
97
© Dunod – La photocopie non autorisée est un délit.
téiques variés interviennent dans ce processus, et
en fait l’ARNt chargé n’est pas seul, mais toujours
associé à un facteur d’élongation servant de transporteur (avec lequel il s’installe dans le site A).
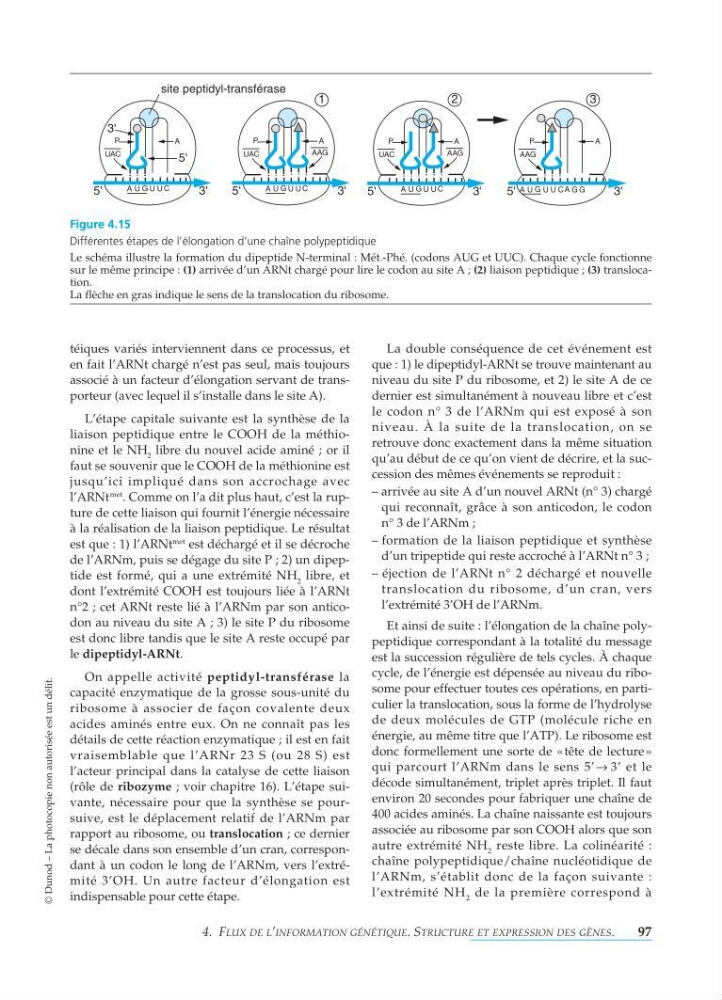
L’étape capitale suivante est la synthèse de la
liaison peptidique entre le COOH de la méthionine et le NH 2 libre du nouvel acide aminé ; or il
faut se souvenir que le COOH de la méthionine est
jusqu’ici impliqué dans son accrochage avec
l’ARNt
met
. Comme on l’a dit plus haut, c’est la rupture de cette liaison qui fournit l’énergie nécessaire
à la réalisation de la liaison peptidique. Le résultat
est que : 1) l’ARNt
met
est déchargé et il se décroche
de l’ARNm, puis se dégage du site P;2) un dipeptide est formé, qui a une extrémité NH 2 libre, et
dont l’extrémité COOH est toujours liée à l’ARNt
n°2 ; cet ARNt reste lié à l’ARNm par son anticodon au niveau du site A;3) le site P du ribosome
est donc libre tandis que le site A reste occupé par
le dipeptidyl-ARNt.
On appelle activité peptidyl-transférase la
capacité enzymatique de la grosse sous-unité du
ribosome à associer de façon covalente deux
acides aminés entre eux. On ne connaît pas les
détails de cette réaction enzymatique ; il est en fait
vraisemblable que l’ARNr 23 S (ou 28 S) est
l’acteur principal dans la catalyse de cette liaison
(rôle de ribozyme ; voir chapitre 16). L’étape suivante, nécessaire pour que la synthèse se poursuive, est le déplacement relatif de l’ARNm par
rapport au ribosome, ou translocation ; ce dernier
se décale dans son ensemble d’un cran, correspondant à un codon le long de l’ARNm, vers l’extrémité 3’OH. Un autre facteur d’élongation est
indispensable pour cette étape.
La double conséquence de cet événement est
que : 1) le dipeptidyl-ARNt se trouve maintenant au
niveau du site P du ribosome, et 2) le site A de ce
dernier est simultanément à nouveau libre et c’est
le codon n° 3 de l’ARNm qui est exposé à son
niveau. À la suite de la translocation, on se
retrouve donc exactement dans la même situation
qu’au début de ce qu’on vient de décrire, et la succession des mêmes événements se reproduit :
–arrivée au site A d’un nouvel ARNt (n° 3) chargé
qui reconnaît, grâce à son anticodon, le codon
n° 3 de l’ARNm ;
–formation de la liaison peptidique et synthèse
d’un tripeptide qui reste accroché à l’ARNt n° 3;
–éjection de l’ARNt n° 2 déchargé et nouvelle
translocation du ribosome, d’un cran, vers
l’extrémité 3’OH de l’ARNm.
Et ainsi de suite : l’élongation de la chaîne polypeptidique correspondant à la totalité du message
est la succession régulière de tels cycles. À chaque
cycle, de l’énergie est dépensée au niveau du ribosome pour effectuer toutes ces opérations, en particulier la translocation, sous la forme de l’hydrolyse
de deux molécules de GTP (molécule riche en
énergie, au même titre que l’ATP). Le ribosome est
donc formellement une sorte de «tête de lecture »
qui parcourt l’ARNm dans le sens 5’→ 3’ et le
décode simultanément, triplet après triplet. Il faut
environ 20 secondes pour fabriquer une chaîne de
400 acides aminés. La chaîne naissante est toujours
associée au ribosome par son COOH alors que son
autre extrémité NH 2 reste libre. La colinéarité :
chaîne polypeptidique/chaîne nucléotidique de
l’ARNm, s’établit donc de la façon suivante :
l’extrémité NH 2 de la première correspond à
AUG UUC
5'
3'
3'
5'
UAC
P
A
AUG UUC
5'
3'
UAC
P
A
AAG
AUG UUC
5'
3'
UAC
P
A
AAG
AUG UUC
5'
3'
AAG
P
A
A GG
site peptidyl-transférase
1
2
3
Figure 4.15
Différentes étapes de l’élongation d’une chaîne polypeptidique
Le schéma illustre la formation du dipeptide N-terminal : Mét.-Phé. (codons AUG et UUC). Chaque cycle fonctionne
sur le même principe : (1) arrivée d’un ARNt chargé pour lire le codon au site A ; (2) liaison peptidique ; (3) translocation.
La flèche en gras indique le sens de la translocation du ribosome.